


-
Rhizocorallium首次在德国被发现和描述(Schütte and Merckel,1761),其显著形态特征是U形潜穴和蹼状构造(Seilacher,1967;林文球等,1986;杨式溥,1999;王约,2004;Schlirf,2011;赵曌,2017;韩继明,2023),通常平行或小角度倾斜于层面,属典型内生迹(杨式溥等,2004;张立军等,2011)。前人系统研究了Rhizocorallium的形态特征并进行了分类,将其划分为两个遗迹种R. jenense和R. commune(Knaust,2013)。R. jenense的遗迹管直径较小,潜穴为被动充填,常倾斜于层面,造迹生物为食悬浮物的多毛类及蟹类(Fürsich,1974a,1974b),遗迹管附近有网状分布或密集排列的抓痕,粪便球粒稀少或缺失,属Glossifungites遗迹相的典型代表,常见于三叠纪—新近纪潮上带固底环境(Farrow,1966;杨式溥和孙永传,1982;Miller III,2003)。R. commune的遗迹管直径较宽,潜穴为主动充填(Seilacher,1967),常与层面平行,造迹生物为食沉积悬浮物的多毛类,遗迹管附近发育平行抓痕及圆粪便球粒,属Cruziana遗迹相的典型代表,赋存于寒武纪—新近纪的潮间带—潮下带的软底环境(Farrow,1966;Fürsich,1974b;杨式溥和孙永传,1982;Miller III,2003)。R. commune本身形态多样,可进一步划分为遗迹亚种(R. commune uliarensis和R. commune problematica)及遗迹变种(R. commune var. auriforme和R. commune var. irregulare)(Knaust,2013)。R. commune uliarensis潜穴与层面呈螺旋式形态交切(Firtion,1958);R. commune problematica潜穴与层面垂直,具后退式蹼状构造(Gümbel,1861);R. commune var. auriforme潜穴尺寸较短,与层面斜交(Hall,1843);R. commune var. irregulare潜穴较长,斜交至平行层面,常呈集群分布(Mayer,1954)。
贵州兴义地区中三叠统关岭组中Rhizocorallium分布广泛且保存良好,其具有蹼状构造的U形潜穴特征已获学界共识,是造迹生物为拓展摄食范围所构建(Knaust,2013)。因此,Rhizocorallium被确定为典型的觅食迹(Fürsich,1974a;赵曌,2017;荆锡贵等,2019;韩继明,2023)。然而,Rhizocorallium潜穴形成机制及次级形态结构尚未明确。现有研究集中在觅食行为塑造的U形潜穴上(林文球等,1986;Schlirf,2011;Knaust,2013;赵曌,2017),忽略了造迹生物其他行为对遗迹形态(次级形态)的影响,导致整体潜穴形成机制认知不足。研究区发现Rhizocorallium除主体U形潜穴外,还有U形潜穴直接连接线形潜穴(次级形态)的结构。基于此,本研究旨在:(1)描述Rhizocorallium潜穴系统的组成;(2)探讨造迹生物行为习性与潜穴形态的联系,从而揭示Rhizocorallium潜穴系统的形成机制;(3)厘清Rhizocorallium潜穴与共生遗迹化石、实体化石之间的组合特征。本研究通过对Rhizocorallium的形态识别与鉴定,深化了对其形成机制的理解,丰富了其形态类型,为古环境重建提供了更可靠的遗迹学证据。
-
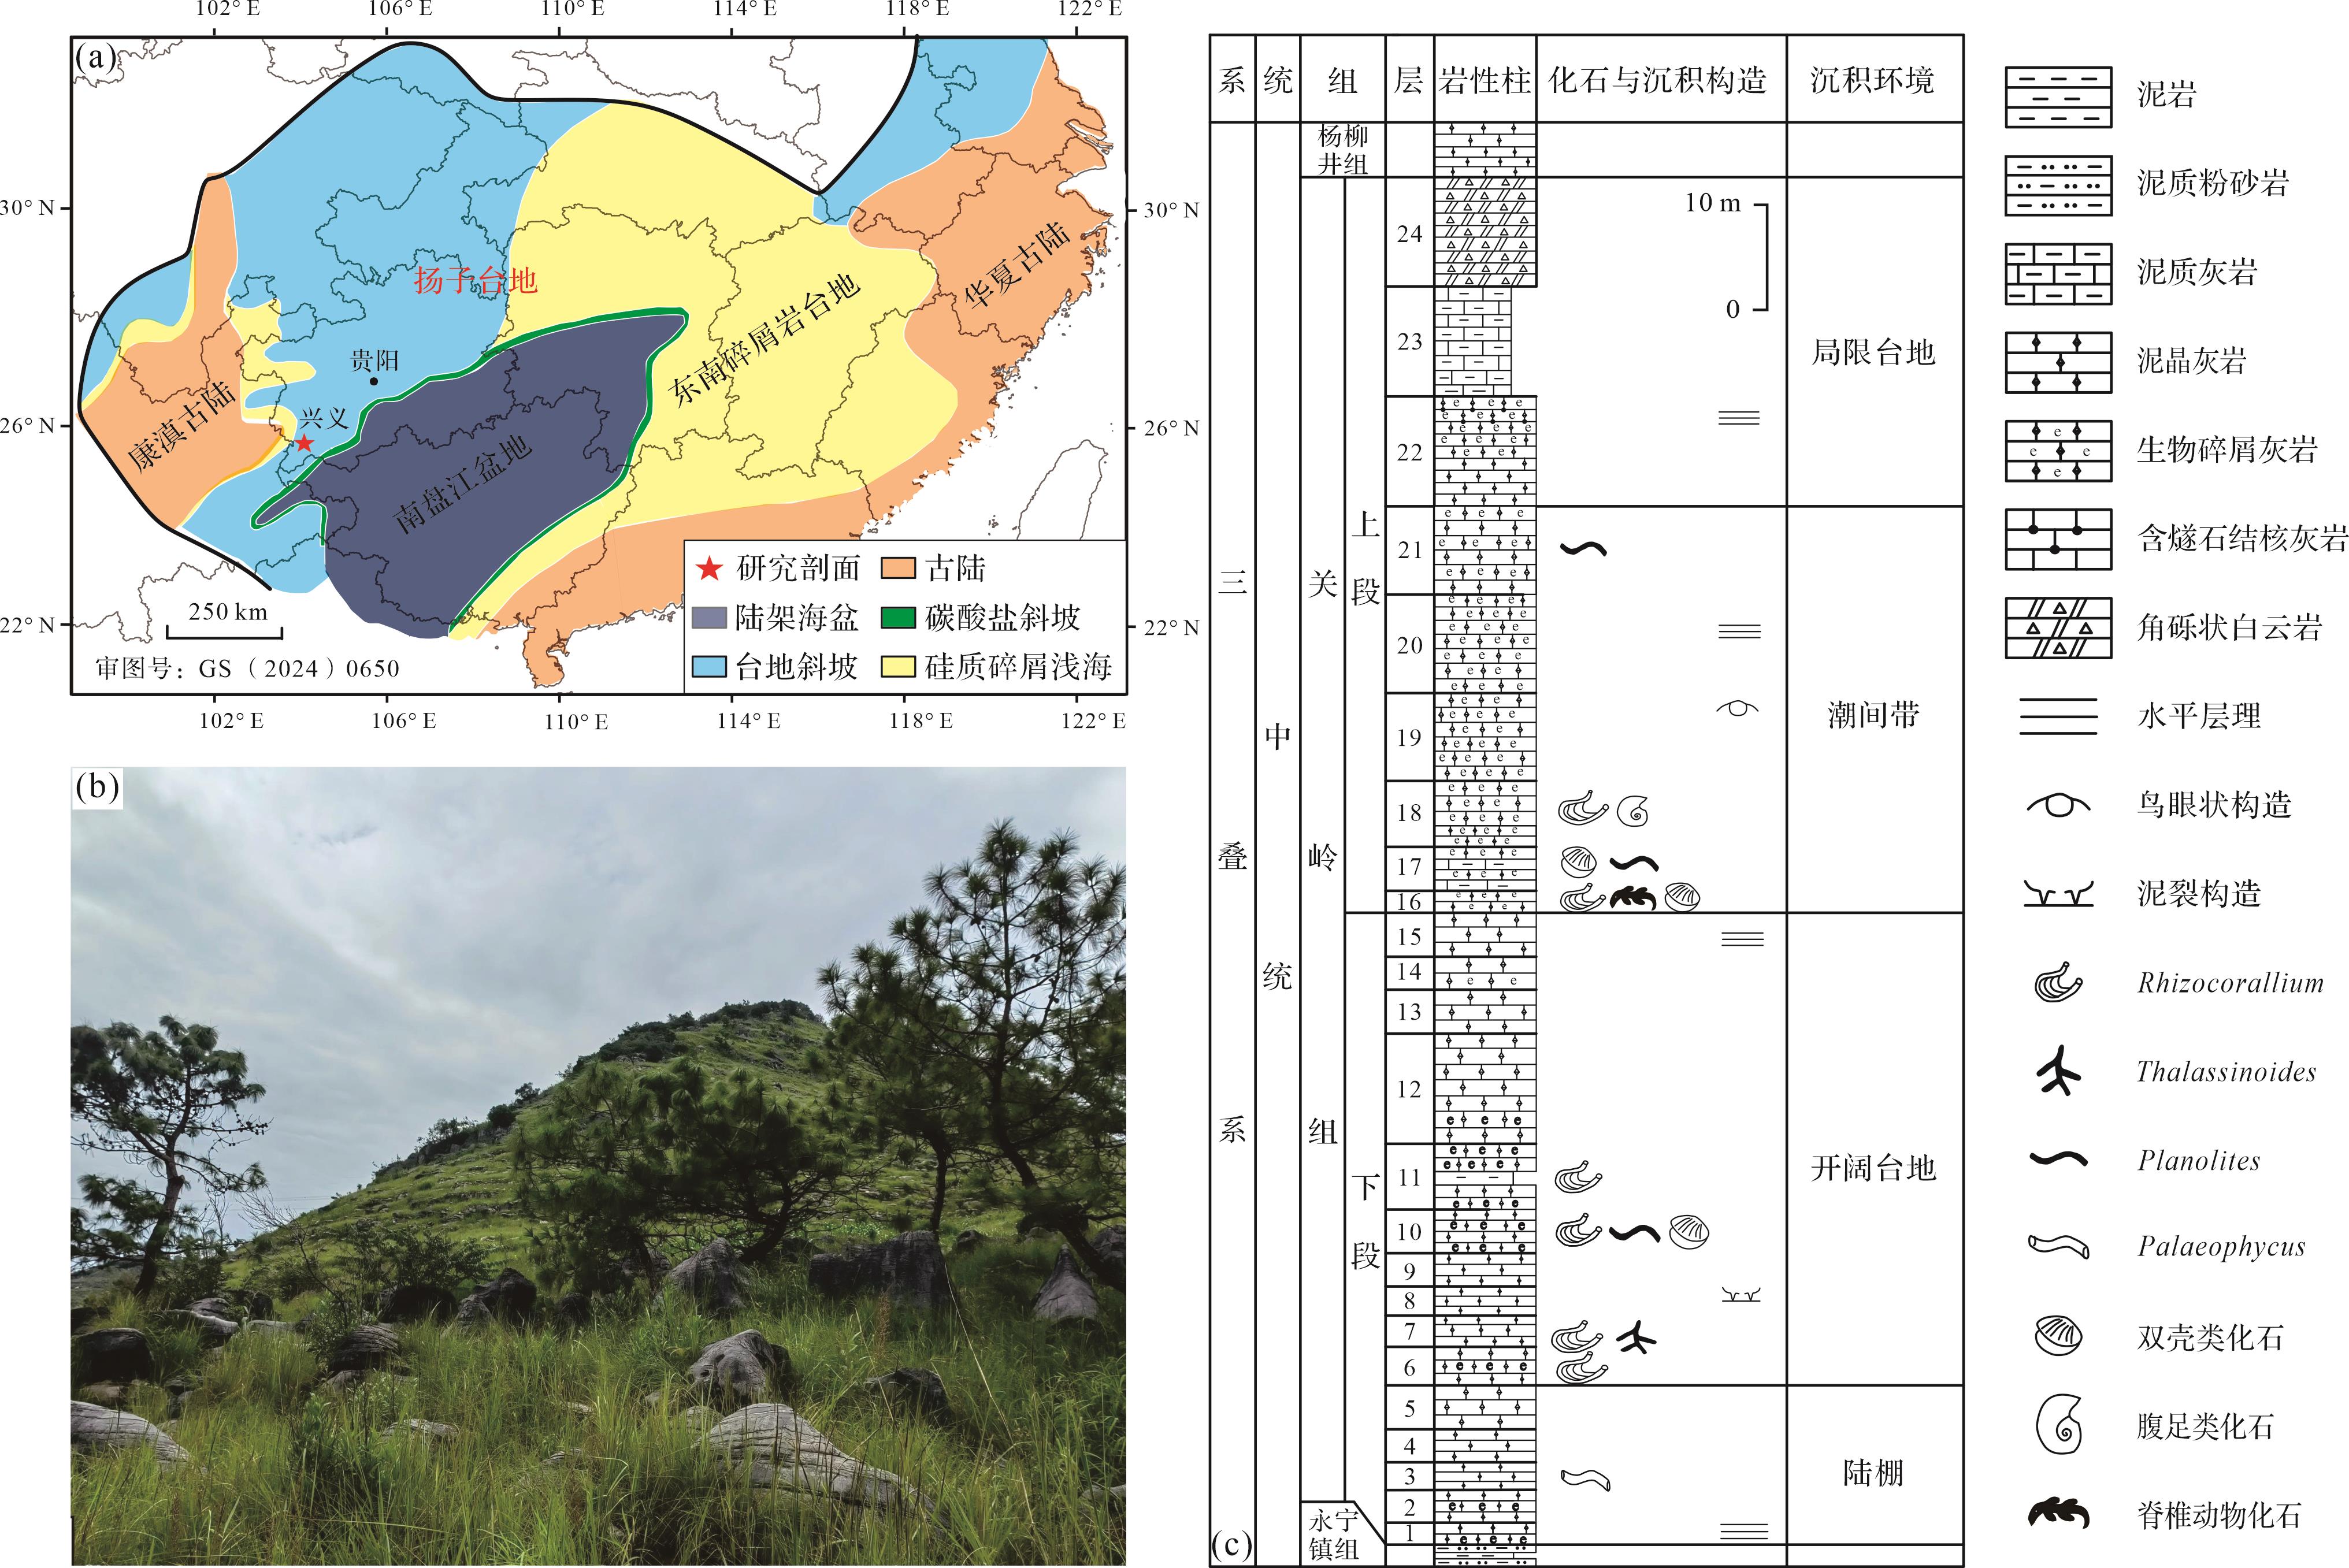
中三叠世贵州省兴义地区位于扬子陆块西南缘,其西邻康滇古陆,东接南盘江盆地(图1a)。该构造格局导致局限型水体交换环境的形成,进而促进碳酸盐台地沉积体系的发育(梅冥相等,2003;肖加飞等,2004;时国等,2010;彭成名等,2016;向坤鹏等,2019)。研究区关岭组下伏地层为下三叠统奥伦尼克阶永宁镇组,上覆地层为中三叠统杨柳井组(图1c)(Ma et al.,2022)。《贵州省区域地质志》(贵州省地质矿产局,1987)将关岭组划分为松子坎段和狮子山段,其主体岩性为灰岩、白云岩和黏土岩,富含双壳类等实体化石。本研究对兴义地区关岭组剖面进行实测(图1b):下段(1~15层)以泥晶灰岩和生物碎屑灰岩为主,见水平层理和泥裂构造,富含Rhizocorallium、Planolites、Palaeophycus和Thalassinoides等遗迹化石;上段(16~24层)以生物碎屑灰岩为主,见鸟眼构造和水平层理,富含Rhizocorallium及双壳类、腹足类和脊椎动物骨骼实体化石(图1c、图2)。

图 1 研究区古地理特征与岩性柱状图
Figure 1. Paleogeographic characteristics and lithology histogram of the study area

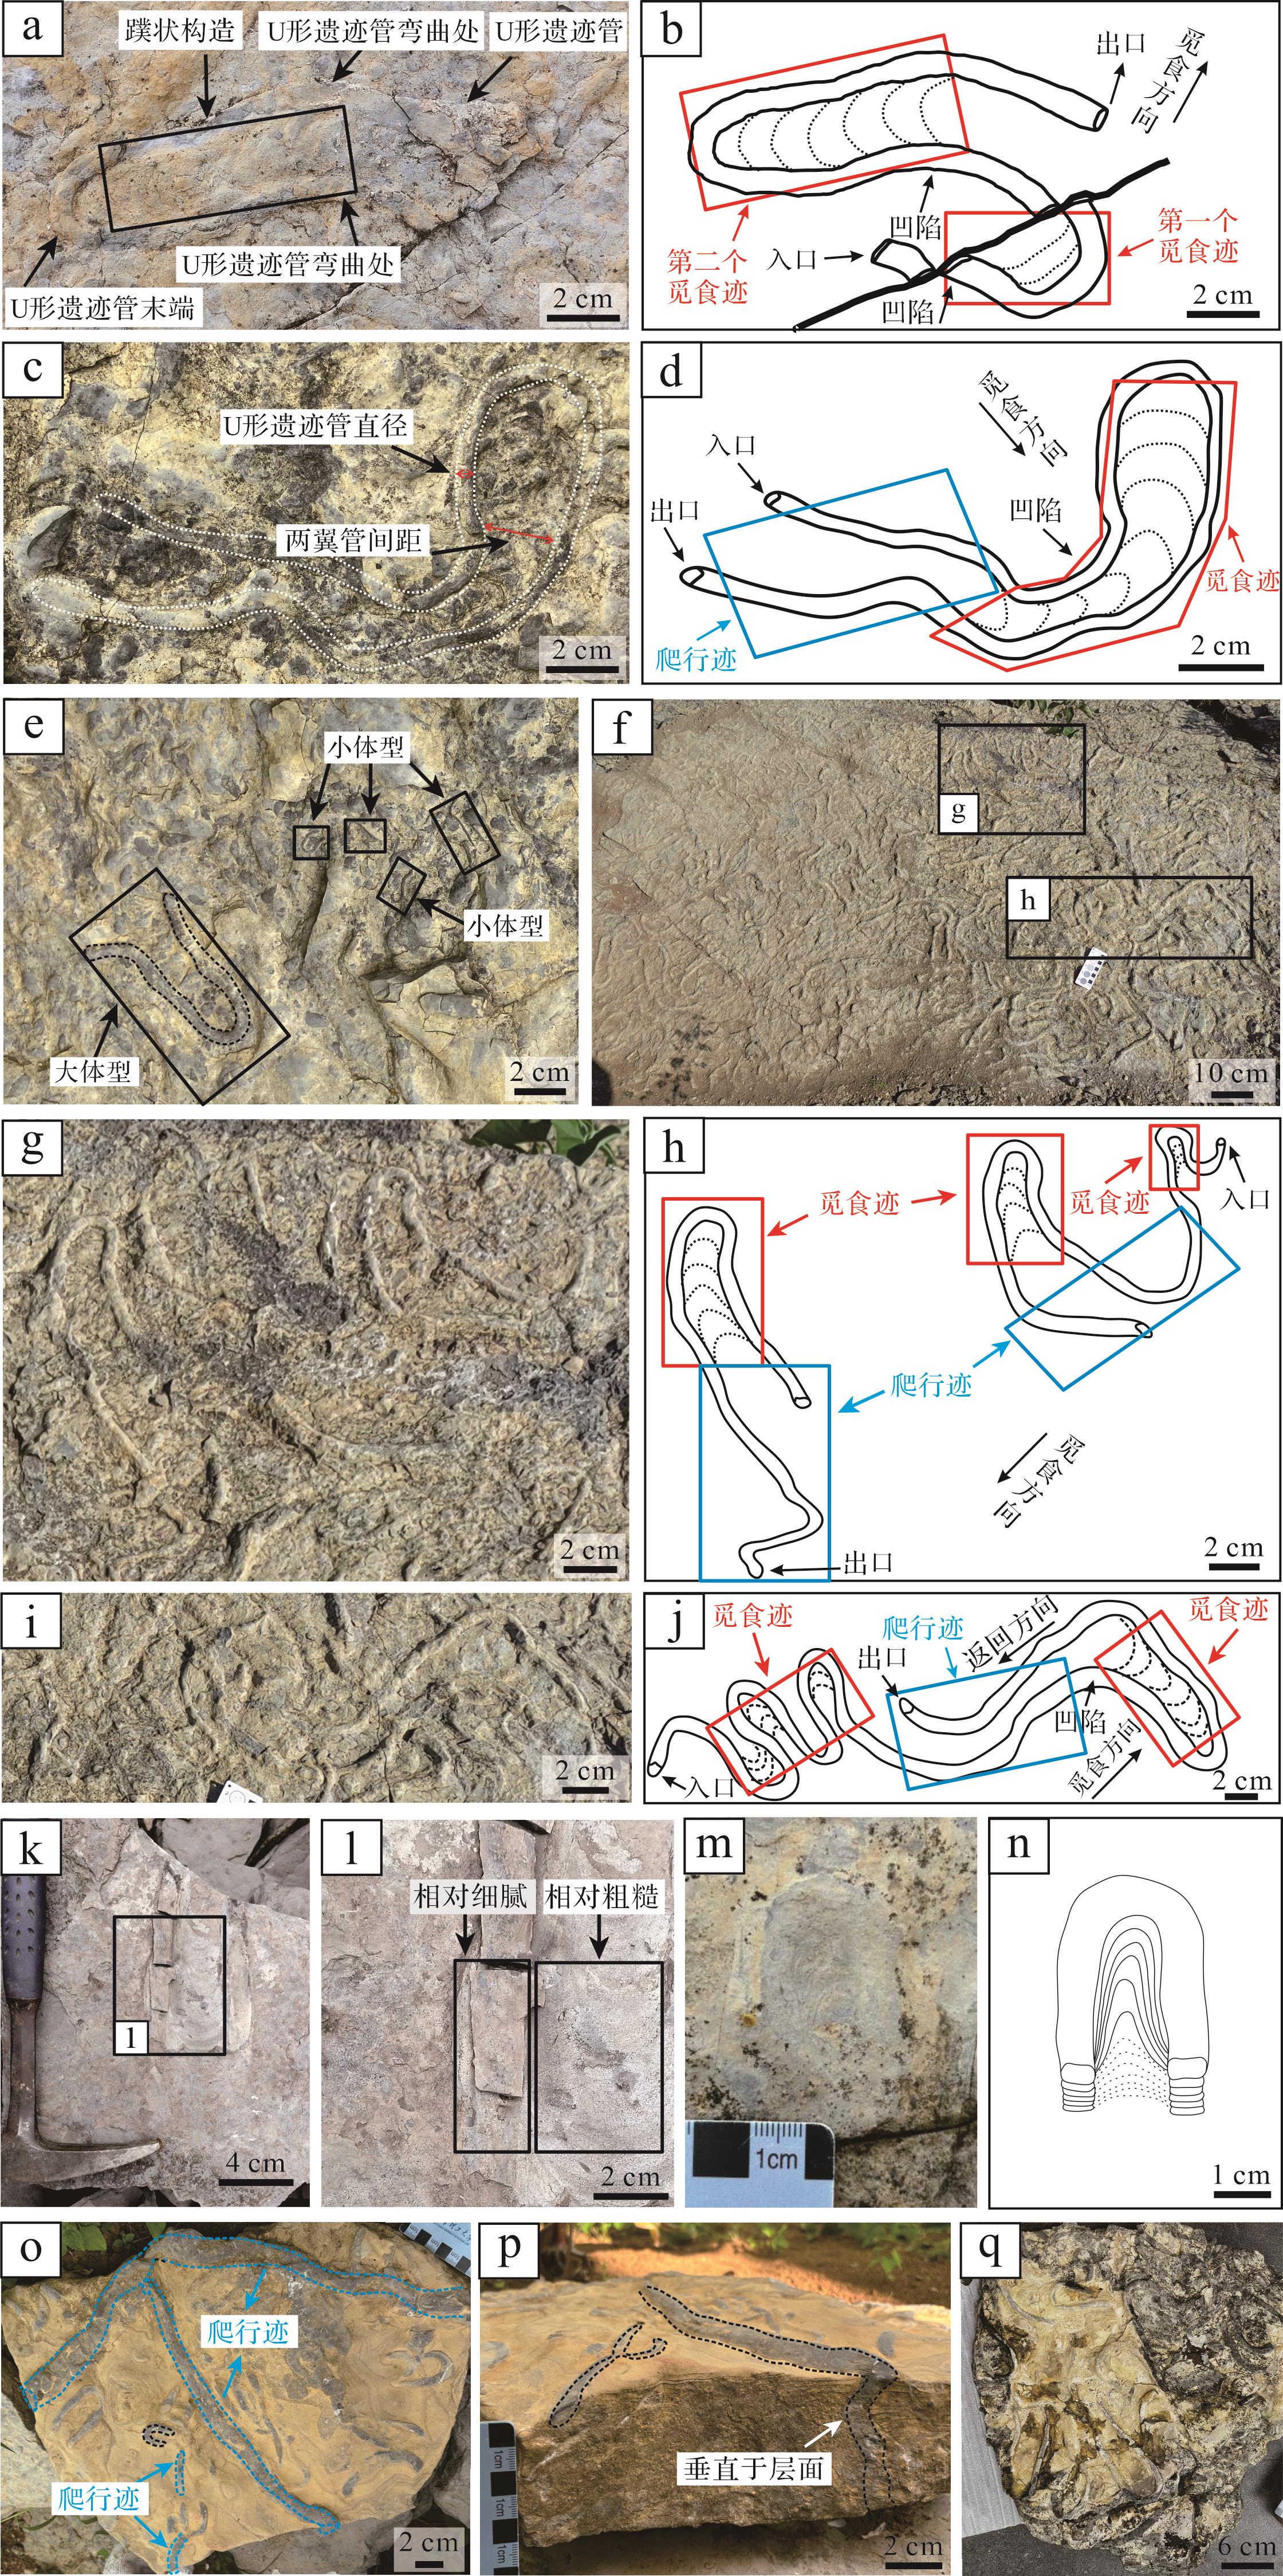
图 2 研究区中三叠统关岭组Rhizocorallium潜穴系统要素
Figure 2. Elements of the Rhizocorallium submarine system of the Middle Triassic Guanling Formation in the study area
-
U形潜穴是Rhizocorallium的核心部分(Fürsich,1974a),是造迹生物规律性爬行与觅食共同形成的觅食迹(杨式溥和孙永传,1982),呈表迹保存(冯学谦,2018)。关岭组的RhizocoralliumU形潜穴由两部分组成:U形遗迹管和蹼状构造(图2a)。U形遗迹管呈规律性的弯曲(图2a~j),蹼状构造集中分布于U形遗迹管弯曲部至末端(图2a),其造迹过程可分为三个阶段。初始觅食阶段:造迹生物从食物源入口构建U形管,于弯曲部位至末端反复摄食,形成第一个具蹼状构造的觅食迹(图2b);调整阶段:随后,通过触觉感知已改造区域,反向构建开口方向相反的U形管,体现造迹生物的趋触性行为(杨式溥,1990),形成第二个觅食迹(图2b);循环扩展阶段:上述过程重复进行,最终形成连续且无穿插的U形潜穴(图2g~j)。潜穴形态学分析表明,造迹生物定向向食物源移动,通过侧向位移形成U形管弯曲,潜穴凹陷方向指示其觅食方向(图2b,d,h,j),符合最大化摄食效率的行为策略(杨式溥,1990;Knaust,2013;韩继明,2023)。此外,蹼状构造区域质地较遗迹管粗糙(图2k,l),这是造迹生物在觅食过程中分泌的黏液将沉积物碎屑固结成砂粒所致(李大庆,1990),部分Rhizocorallium样品中的U形潜穴缺少蹼状构造,推测与潜穴侵蚀改造有关(图2o~q)。
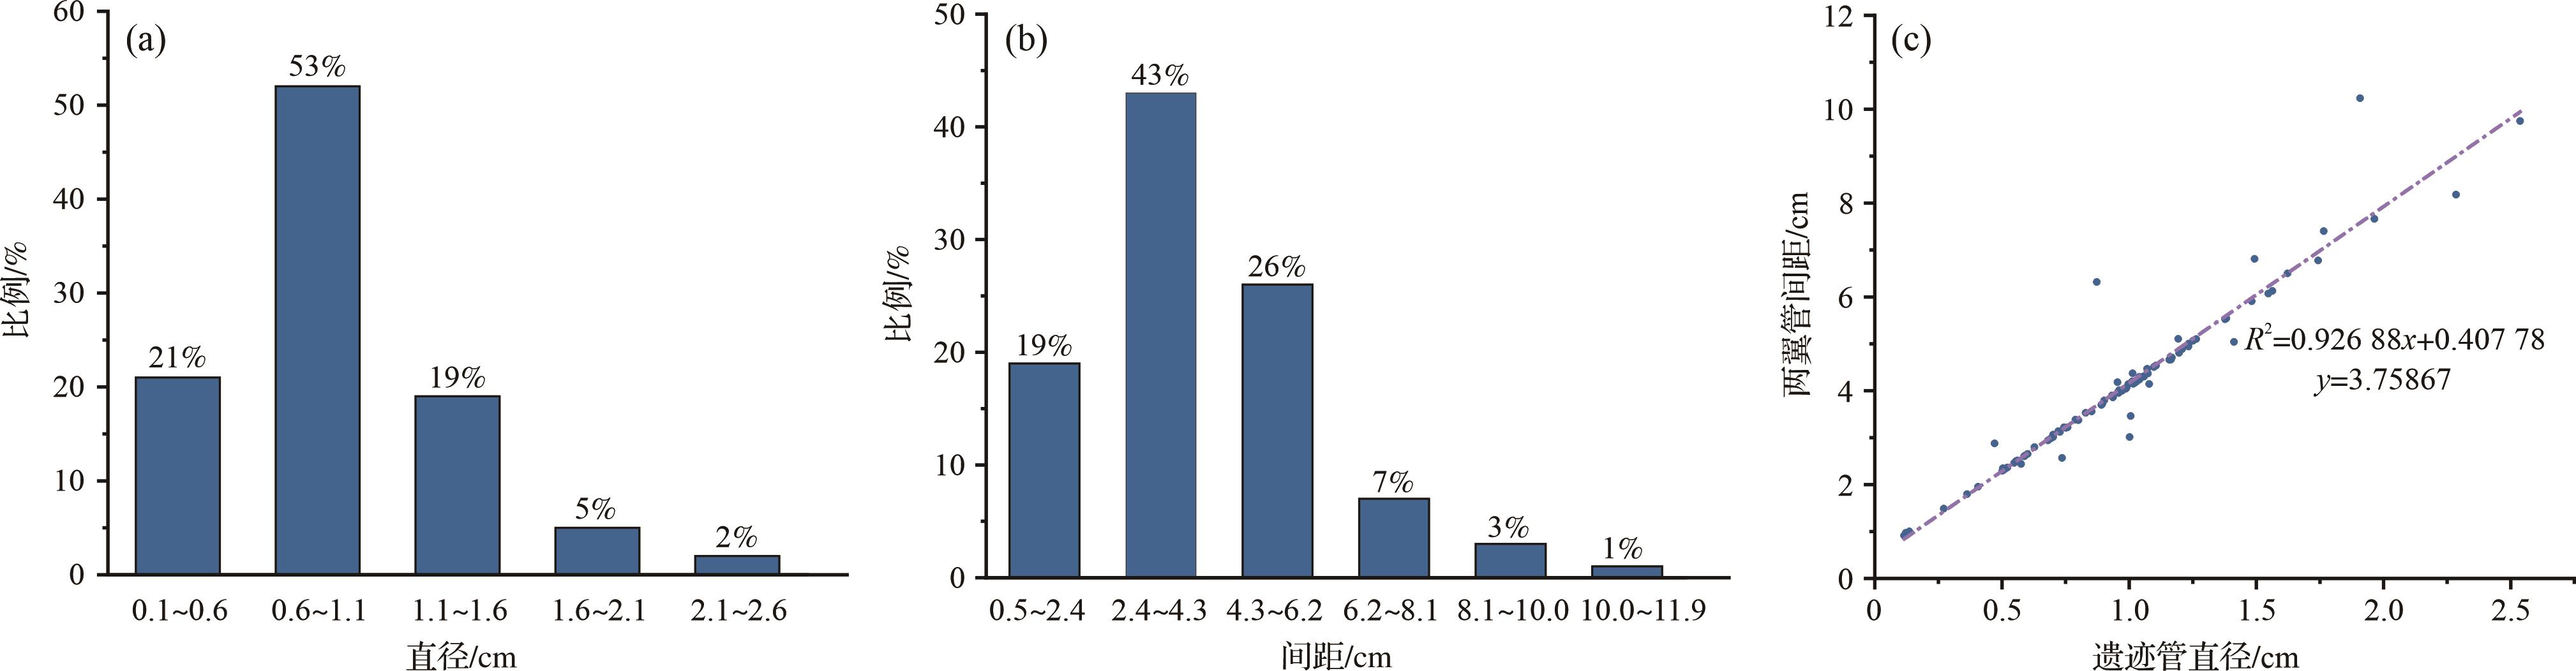
此外,对99个Rhizocorallium的U形潜穴的遗迹管直径及两翼管间距进行统计(图2c),结果表明:遗迹管直径介于0.1~2.6 cm,其中53%集中在0.6~1.1 cm(图3a);两翼管间距为0.5~11.9 cm,其中43%分布于2.4~4.3 cm,26%分布于4.3~6.2 cm(图3b)。相关性分析显示,遗迹管直径与两翼管间距呈高度正相关(R²=0.926 88,图3c),说明随着造迹生物体型增大导致遗迹管直径增加时,两翼管间距同步扩展。此外,在U形潜穴附近还分布有少量小体型U形潜穴,其几何形态与大体型相似,但尺寸相对较小(图2e、图3c)。上述特征表明,造迹生物通过高度规律的行为模式,在持续性活动中实现体型增长与生态位扩张(图2g,h),进一步印证二叠纪末大灭绝事件后机会种(r-选择)的高效觅食行为适应贫瘠环境的演化机制(Basan and Scott,1979;Pemberton et al.,2001;张立军等,2015;Zhao et al.,2020;韩继明,2023;Li et al.,2025)。

图 3 研究区中三叠统关岭组Rhizocorallium U形潜穴参数频率分布直方图
Figure 3. Histogram of the frequency distribution of U⁃shaped burrow parameters of Rhizocorallium from the Middle Triassic Guanling Formation in the study area
-
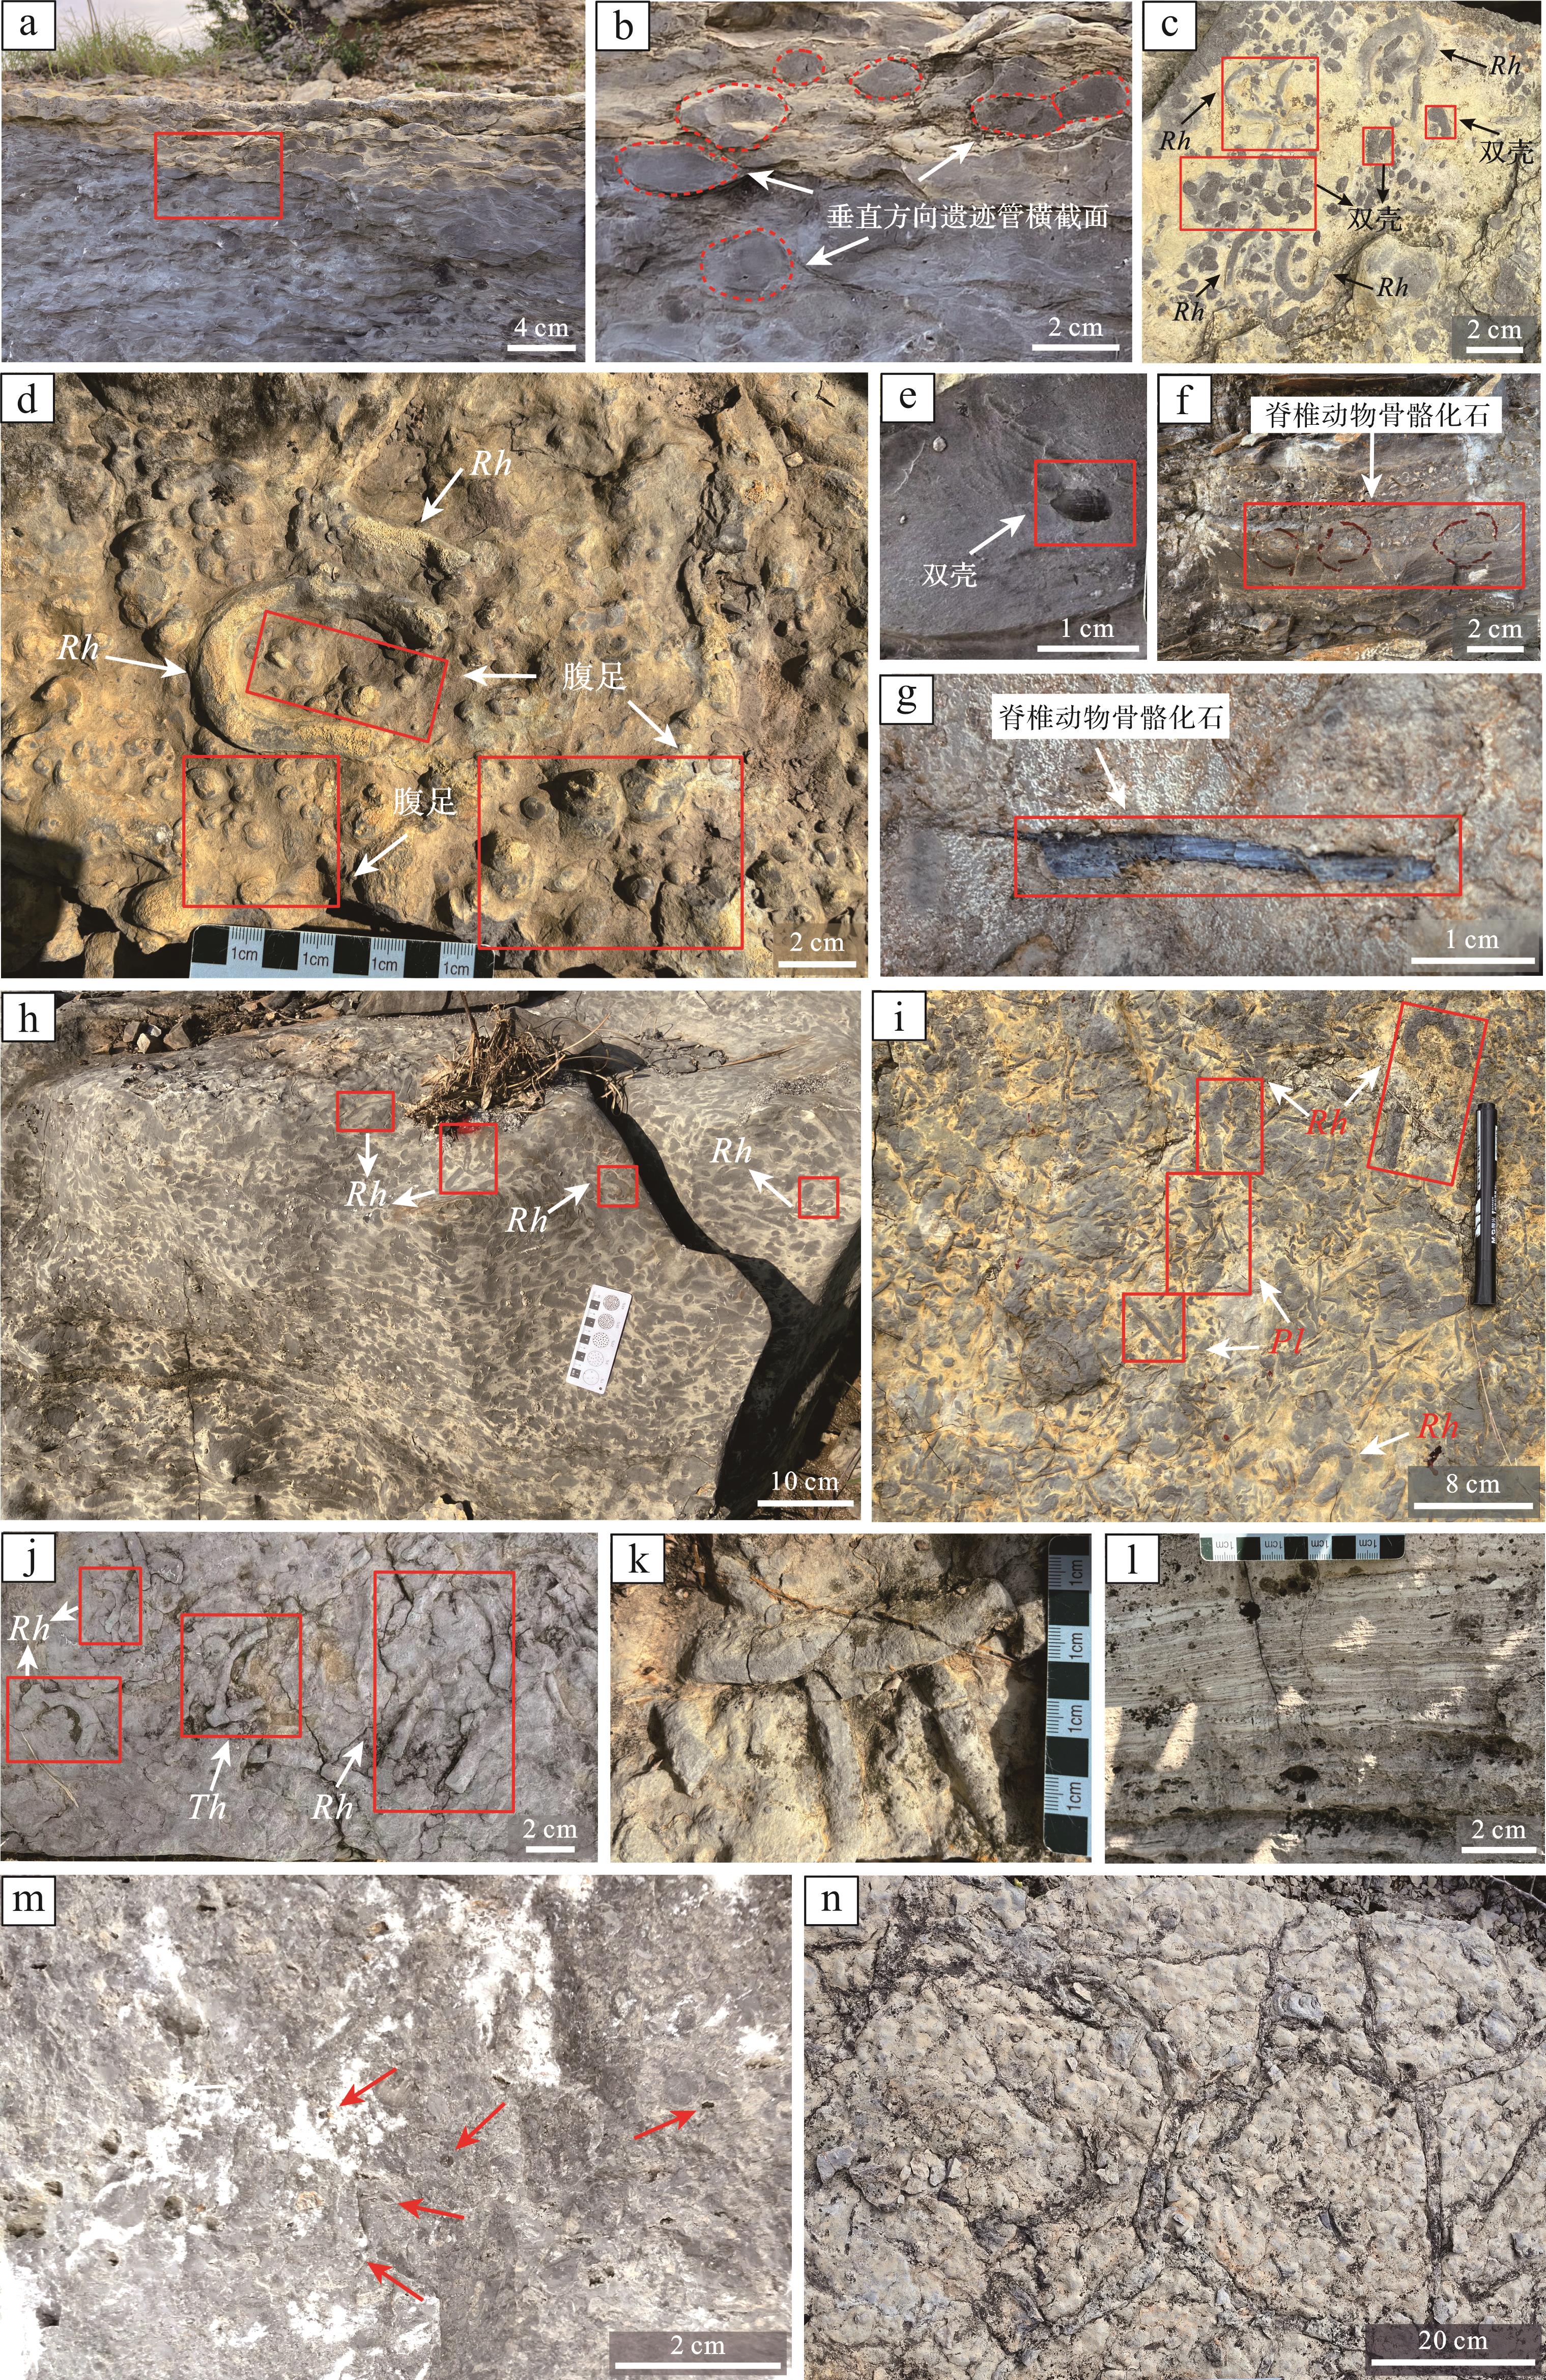
Rhizocorallium密集发育且平行于层面(图4)。观测表明,其平均密度为每0.25 m²含15个U形潜穴(图2f),垂直方向上,遗迹管横截面密度高达1 940个/m²(图4a,b),表现为U形觅食迹与线形爬行迹连接的复合潜穴系统(图2f~j)。这些密集分布的潜穴指示造迹生物采用了高效觅食策略,即通过最大化覆盖沉积层面并避免觅食路径重叠来适应沉积界面的低营养条件(杨式溥,1990)。与之相比,稀疏分布的潜穴(图4c,d)是在快速沉积与营养供给相对充足的条件下,造迹生物转而采取随机觅食行为,降低了对水平生态位扩展的需求。

图 4 研究区中三叠统关岭组遗迹化石—实体化石富集层
Figure 4. Trace fossils and solid fossils of the Middle Triassic Guanling Formation in the study area
-
斜交或垂直于层面的Rhizocorallium潜穴主要呈现三类分布特征:(1)密集分布、小角度斜交于层面的U形觅食迹(图2q、图4h);(2)孤立分布的U形潜穴发育斜交层面的蹼状构造(图2m,o);(3)垂直于层面的线形爬行迹(图2p)。上述特征(1)和(2)表明,造迹生物通过调整其U形觅食迹的倾角(由平行层面变为斜交层面)来响应沉积速率的变化(Knaust,2013),当沉积速率加快时,倾斜或垂直的潜穴有助于造迹生物追踪沉积界面的抬升,维持觅食效率。特征(3)所代表的垂直于层面的线形爬行迹,则更可能反映了造迹生物在快速沉积事件下的垂直逃逸行为(Wang et al.,2024)。
-
生物扰动强度受沉积速率与水动力条件控制(杨群慧等,2008;余关美和时国,2016;Shi et al.,2019)。关岭组的Rhizocorallium广泛分布,其扰动强度以生物扰动指数(BI)定量表征(Taylor and Goldring,1993)。下段密集分布的Rhizocorallium对应BI=3~5(图2f、图4a、表1),属强扰动级别,指示较低的沉积速率与相对稳定的水动力环境。在此条件下,沉积物中营养物质的更新受限,促使造迹生物采用高效觅食策略以适应环境,同时低能环境也有利于遗迹的保存。上段分布较稀疏的Rhizocorallium对应BI=1~3,(图4c,d、表1),属中—弱扰动级别,反映较高的沉积速率与较强的水动力条件。高频的沉积物输入可能带来相对充足的营养物质,促使造迹生物采取随机觅食行为,同时高能水动力和快速埋藏导致遗迹保存潜力较低。
表 1 生物扰动等级分类(Taylor and Goldring,1993)
Table 1. Classification of bioturbation grade (Taylor and Goldring, 1993)
扰动指数 扰动量/% 描述 0 0 无生物扰动现象 1 1~5 极少且清晰的遗迹化石及逃逸构造,零星的生物扰动现象 2 6~30 遗迹化石分布较为稀疏,逃逸构造现象普遍,层理清晰,生物扰动程度较低 3 31~60 遗迹化石轮廓分明,无重叠现象,层理界面明晰,扰动程度中等 4 61~90 遗迹化石分布密度较高,呈现出明显的叠覆现象,层理界面模糊不清,生物扰动程度较高 5 91~99 沉积物再改造程度较低,后期形成的遗迹化石轮廓较为清晰,层理界面彻底遭到破坏,生物扰动程度强 6 100 遗迹化石几乎全部叠覆在一起,难以鉴别其遗迹形态,沉积层面受到造迹生物的反复改造,层理界面彻底遭到破坏 -
关岭组下段以丰富的Rhizocorallium为主,同时与Planolites、Palaeophycus及Thalassinoides共生(图4i~k)。按造迹生物行为习性可将这些遗迹化石划分为三类(胡斌,2020)(表2):(1)觅食迹,Rhizocorallium以U形潜穴为主(常伴生线形爬迹),均为主动充填,其产状多变(平行、斜交和垂直层面);(2)进食迹,Planolites呈管状潜穴,为主动充填,沿层面平行分布(胡斌,2020);(3)居住迹,包括管状潜穴Palaeophycus(平行和斜交层面)及Y形分枝潜穴Thalassinoides(斜交层面),后者兼具觅食功能(齐永安等,2013;苗兰云和朱茂炎,2014;张喜洋等,2015)。
表 2 研究区中三叠统关岭组下段遗迹化石发育特征
Table 2. Fossil development characteristics of relics in the lower member of the Middle Triassic Guanling Formation in the study area
遗迹属 形态特征 造迹生物习性 层面关系 充填形式 Rhizocorallium U形、线形 觅食、爬行 平行、斜交、垂直 主动 Planolites 管状 进食 平行 主动 Palaeophycus 管状 居住 平行、斜交 被动 Thalassinoides Y形分枝 居住、觅食 斜交 主动 关岭组上段,Rhizocorallium则主要与实体化石共生(图4c~g),实体化石以高多样性和完整保存状态为特征:(1)绝大多数双壳类壳体保存完整,多数为单壳、凸面向上平躺于层面,随机分布(图4c);(2)腹足类壳体尺寸分异度大(0.5~3.0 cm),螺塔与壳口完整,部分呈口部向下或侧卧状态(图4d);其壳腔多被泥晶基质充填,指示了快速埋藏过程;(3)脊椎动物骨骼可分为两种类型:一类为深灰色的细长骨(直径约0.2 cm),呈细柱状(图4g);另一类为浅灰色的管状长骨(直径约0.6 cm),横截面显示其典型的中空髓腔结构(图4f)。
-
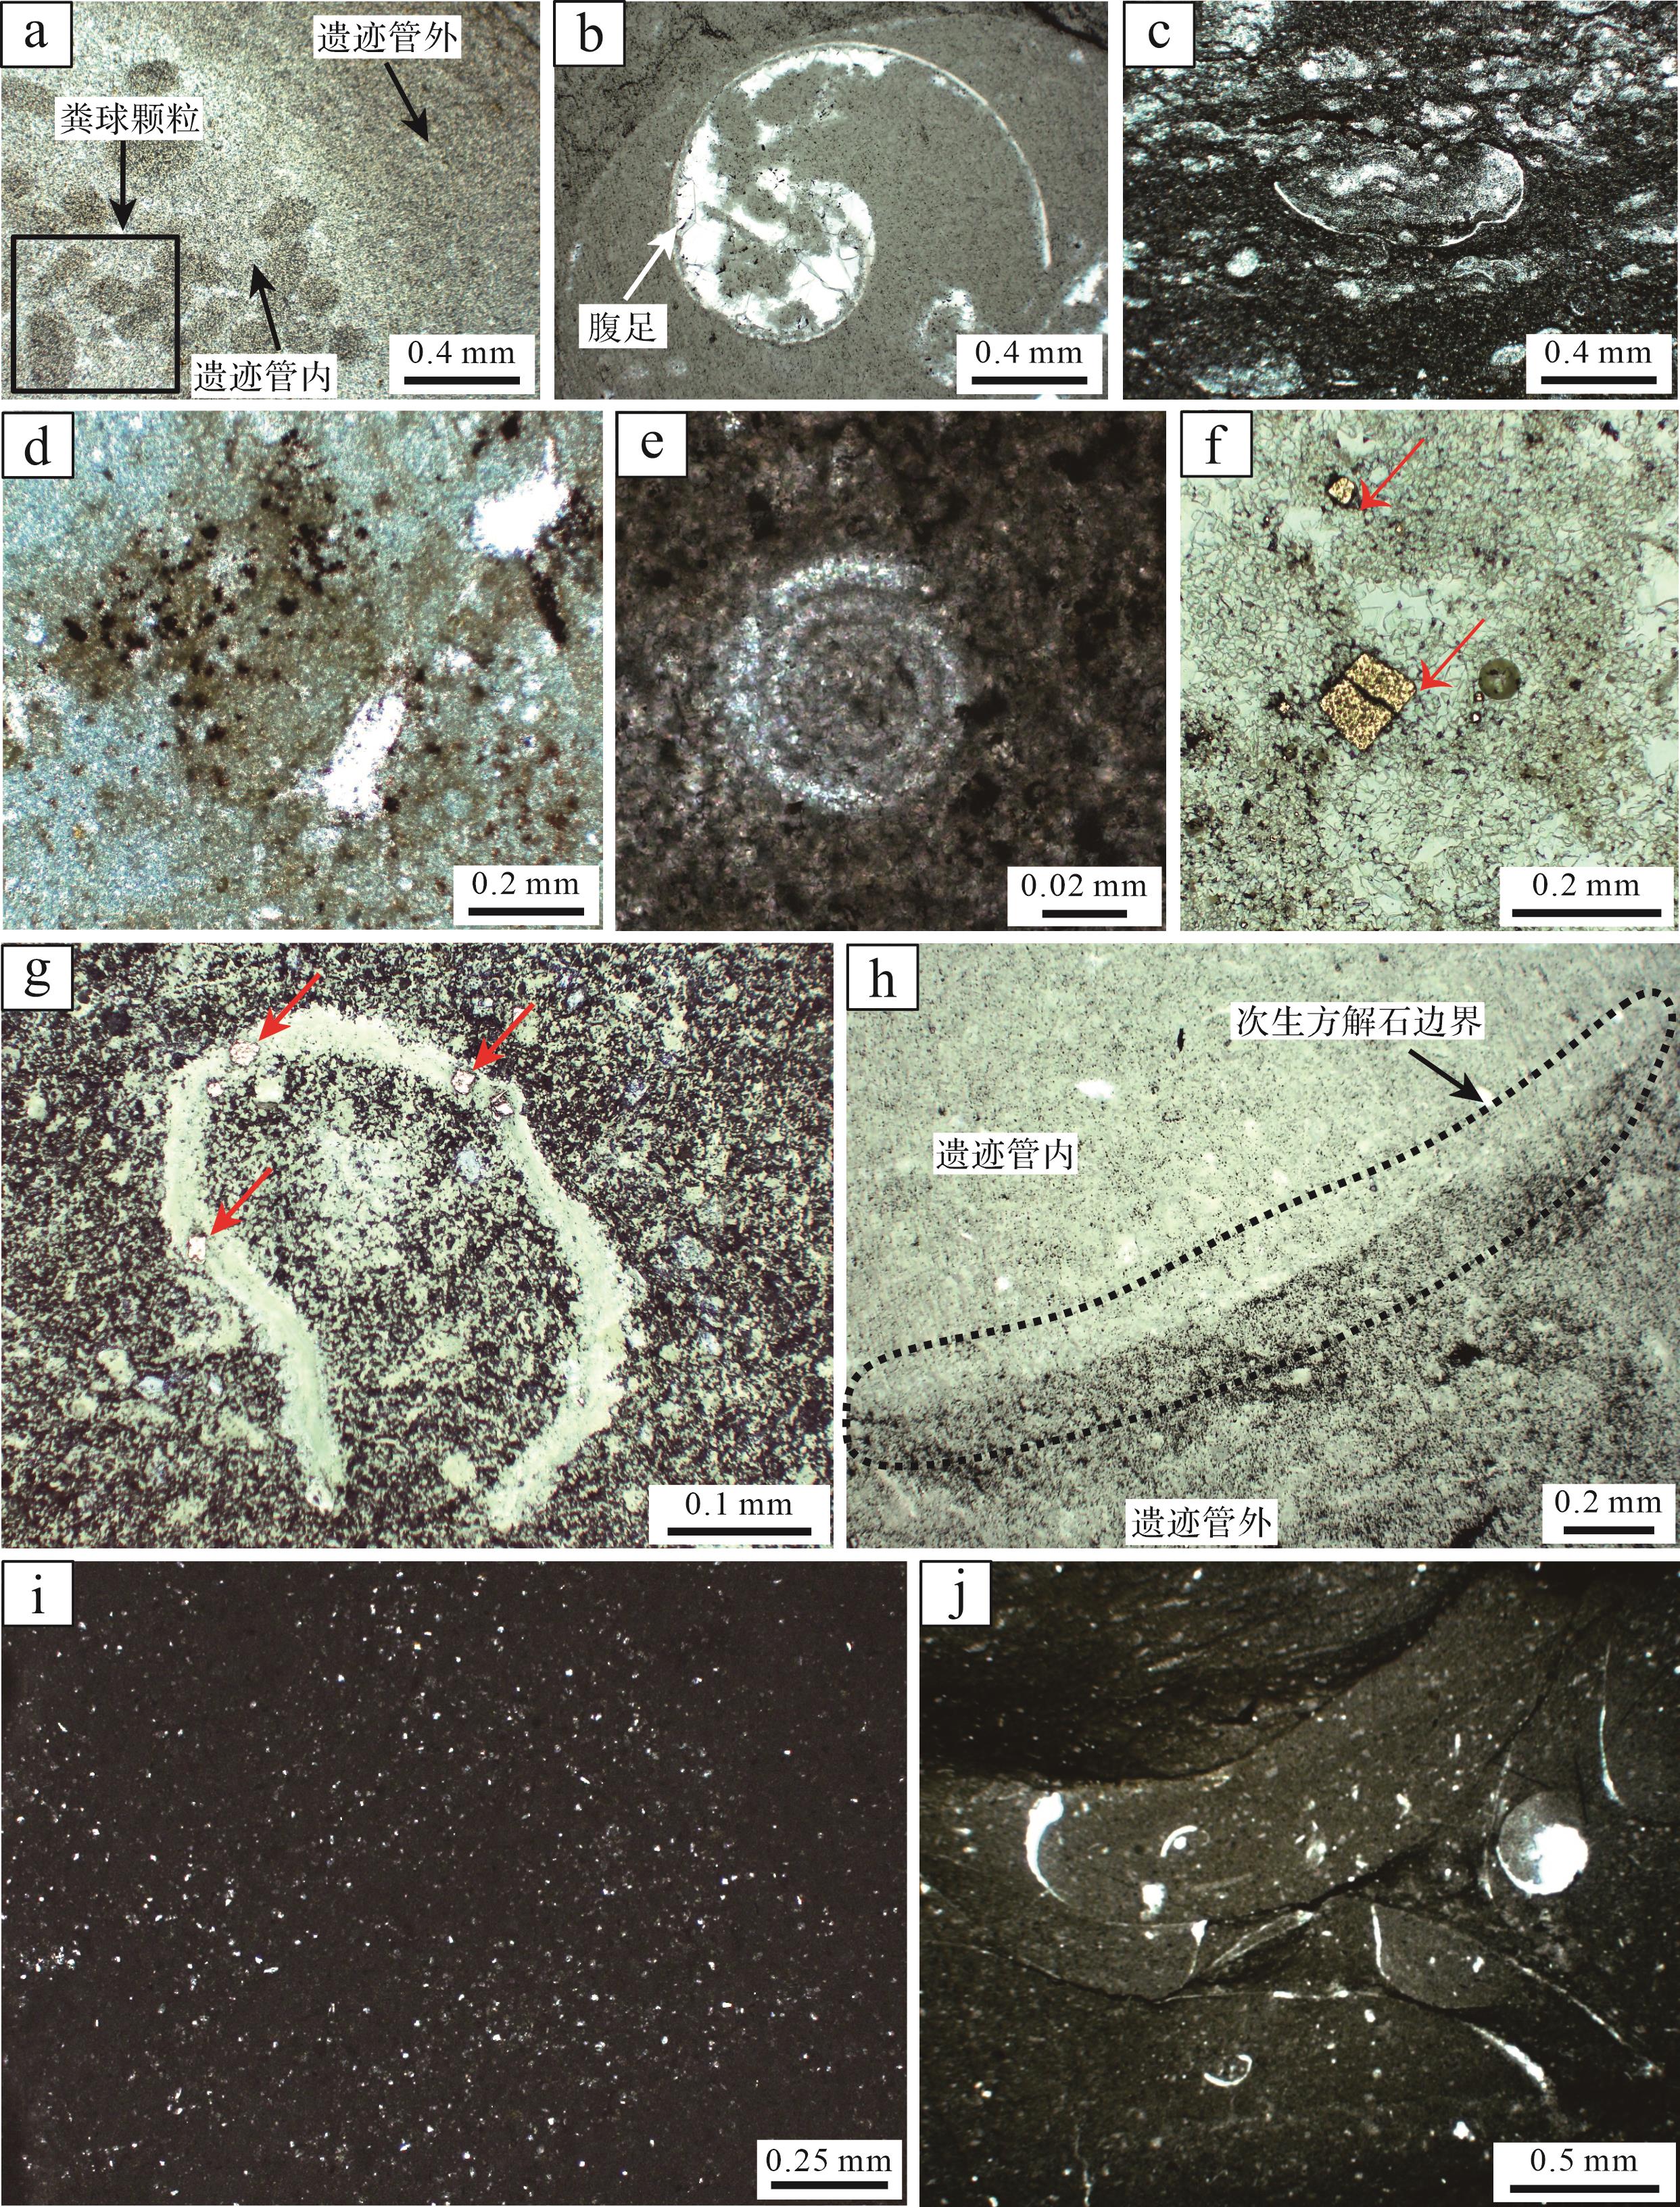
研究区部分Rhizocorallium的U形潜穴遗迹管内含粪球粒、腹足类及双壳类化石(图5a~c)。双壳类壳体以薄壳小个体为主,长度介于0.1~2.0 mm。围岩中发育藻团块、有孔虫(图5d,e)及蹼状构造处的黄铁矿(图5f,g),指示贫氧成岩环境(Zhang et al.,2016;赵曌和张立军,2017)。遗迹管内岩性为细粉晶灰岩,围岩为泥晶灰岩,指示造迹生物在主动充填过程中消耗了管内有机质,导致管内颜色浅于围岩(图5a,h);显微镜观察显示,U形潜穴系统内,蹼状构造处的沉积物粒度最粗,遗迹管内部充填物次之,围岩粒度最细;而有机质含量则呈相反趋势分布,揭示造迹生物对沉积结构的改造。遗迹管与围岩界黏液方解石胶结边界(图5h),为造迹生物分泌黏液固结潜穴所致。研究区关岭组的Rhizocorallium主要赋存于泥晶灰岩和生物碎屑灰岩中(图5i,j)。

图 5 研究区中三叠统关岭组Rhizocorallium显微结构特征
Figure 5. Microscopic structural characteristics of Rhizocorallium from the Triassic Guanling Formation in the study area
-
研究区部分Rhizocorallium潜穴系统为U形潜穴直接连接线形潜穴的觅食—爬行迹组合(图2a~d,f~j,o,p)。其形成过程以图2i、j为例:造迹生物始于入口,沿食物源觅食形成多个相连U形觅食迹;转向下一个食物源时,觅食行为转为爬行,形成线形爬行迹;到达新食物源后再次觅食形成U形觅食迹;终结时转为爬行形成爬行迹返回出口。由此可见,此类潜穴的形成机制在于造迹生物觅食与爬行行为的相互转化。觅食行为塑造U形觅食迹,而食物源分布不均触发觅食行为转为爬行,形成线形爬行迹。其中,连接不同觅食区域的线形爬行迹由生物自身趋避性所致(杨式溥,1990),是实现高效觅食的关键过渡环节。
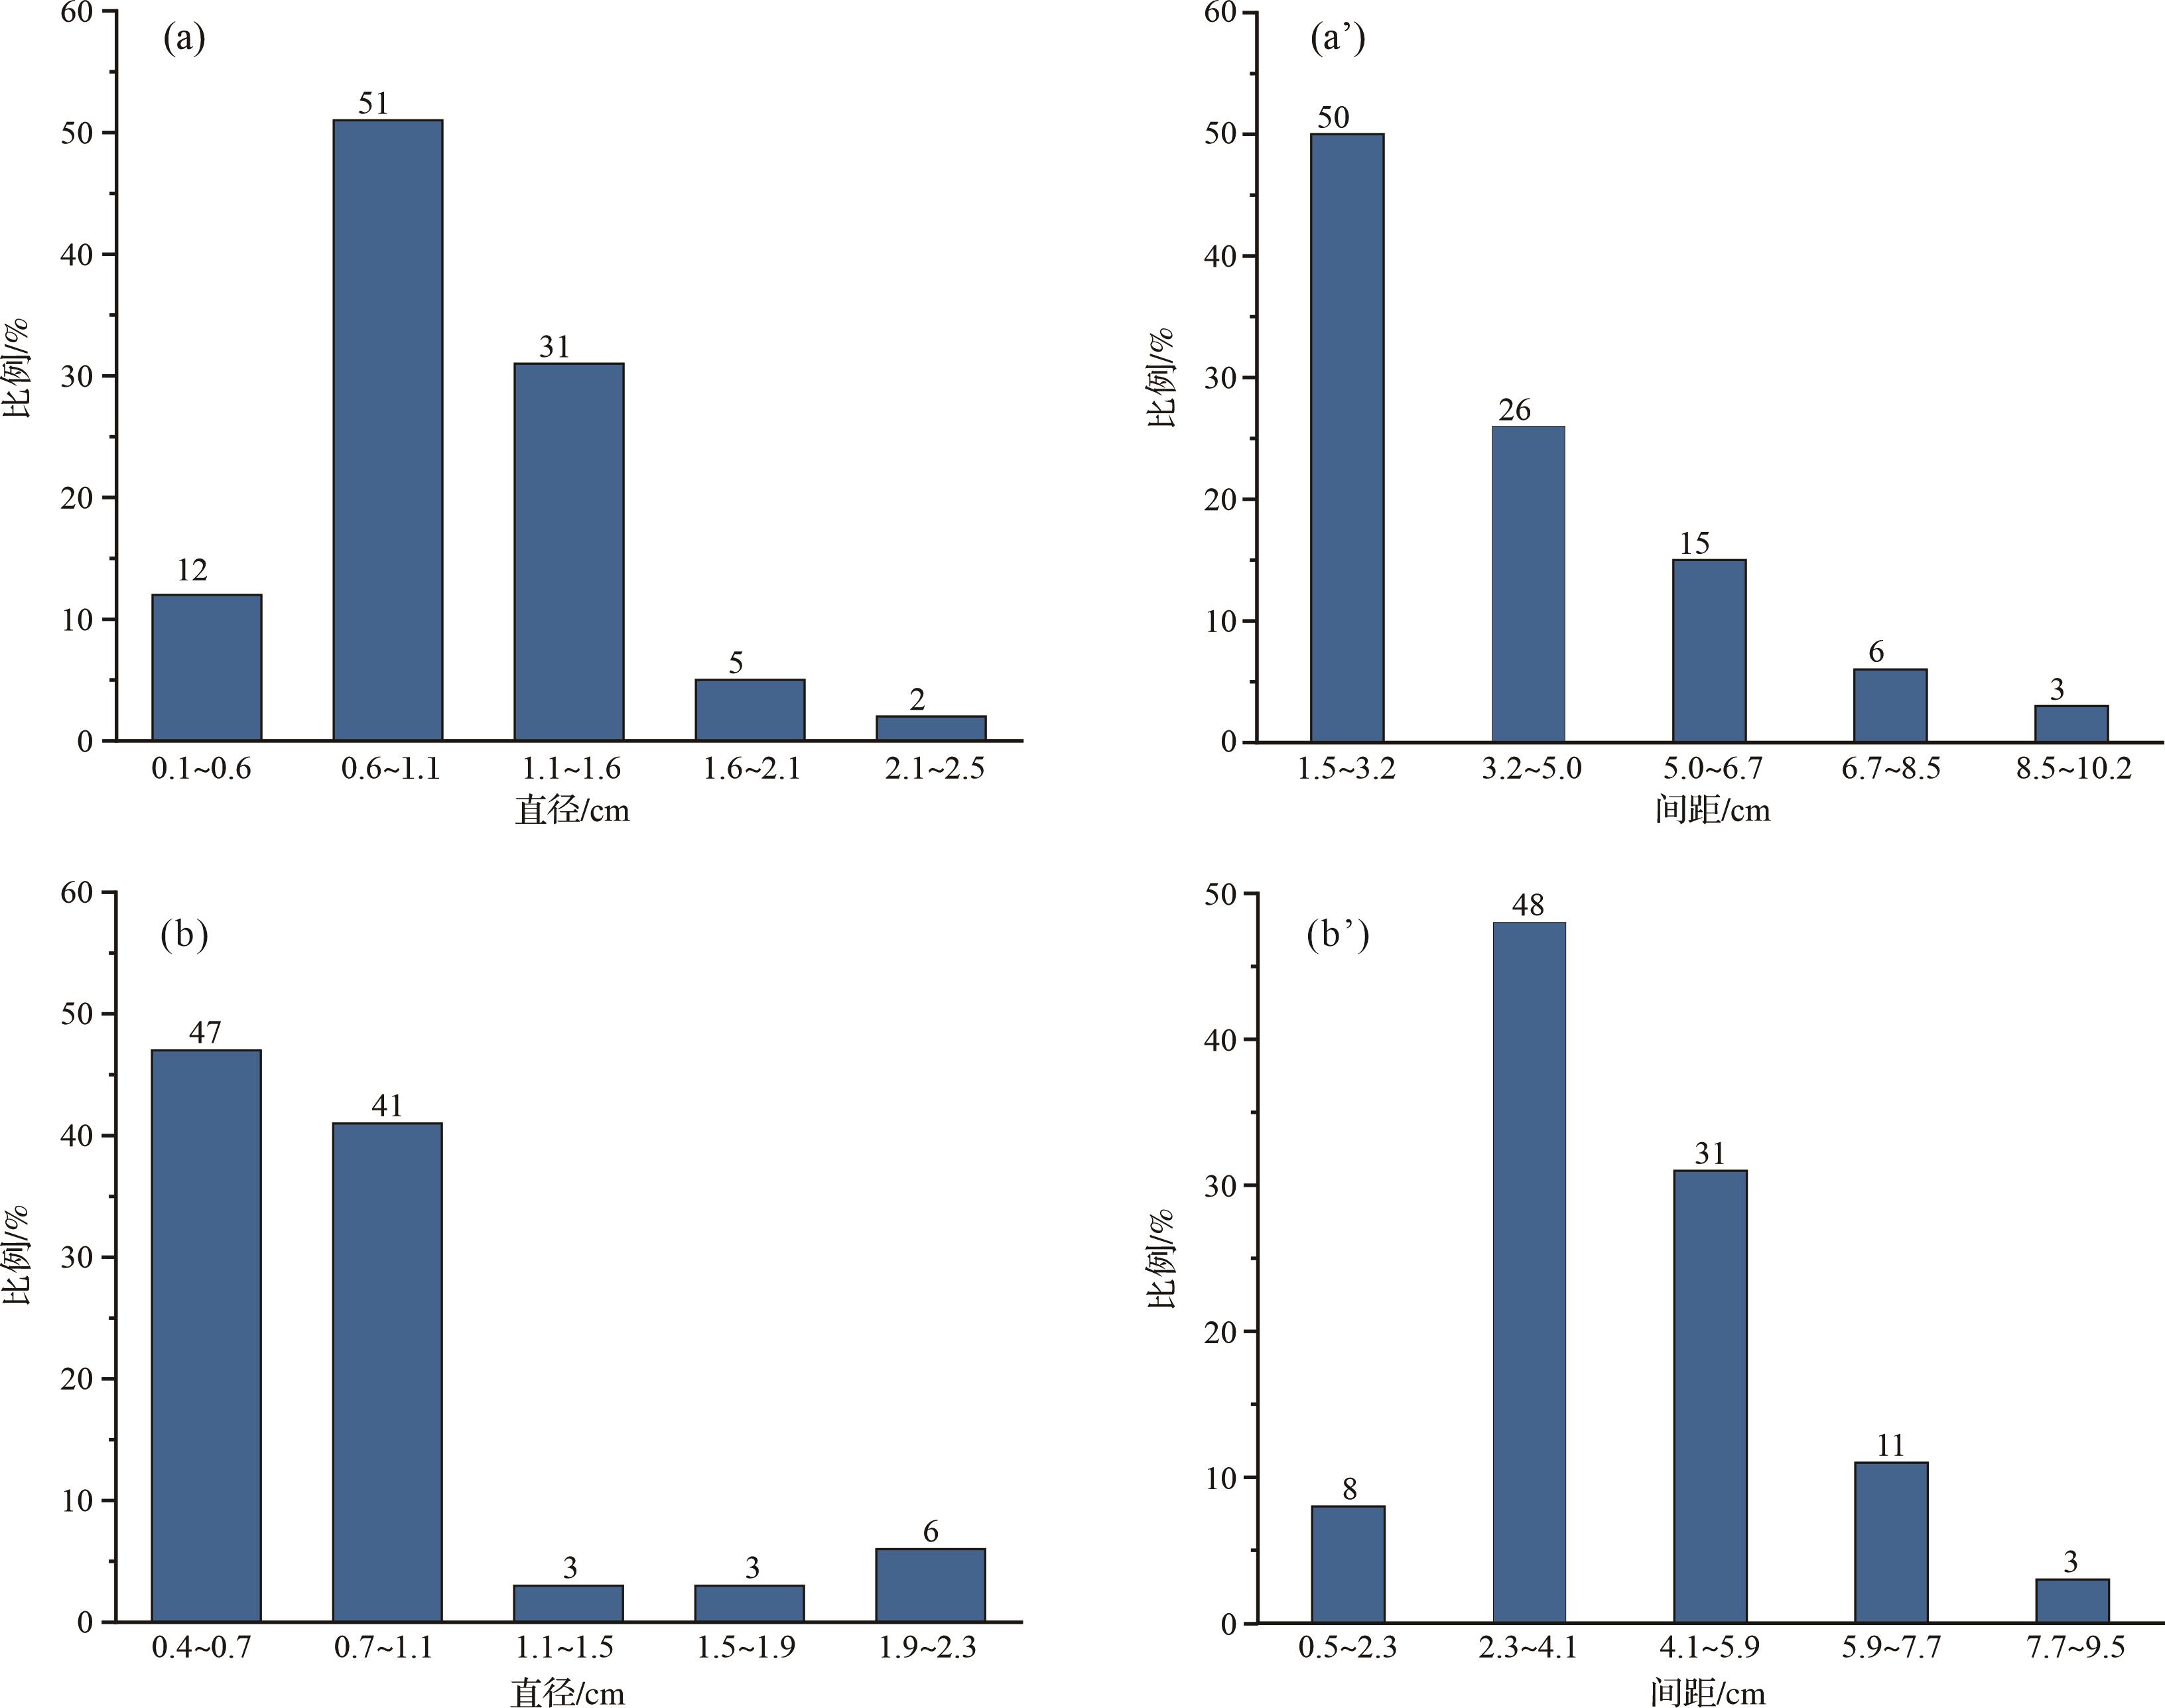
Rhizocorallium潜穴系统结构及其形成机制的阐明,不仅丰富对该遗迹属潜穴系统的构成的认识,还能使其成为遗迹属种划分的重要依据。研究区的Rhizocorallium以U形潜穴为主要形态,常伴生线形潜穴,部分U形潜穴发育蹼状构造并呈主动充填形式,绝大多数与层面近平行,遗迹管内常伴生粪球粒,据此可归属于遗迹种R. commune(Knaust,2013)。根据潜穴系统结构、层面关系及沉积环境差异,研究区的R. commune主要划分为两个遗迹变种(表3)。下段以R. commune var. irregulare为主(图2a~l、图4a,b)(Mayer,1954),呈遗迹群形式,其潜穴系统由U形和线形潜穴构成,U形潜穴两翼间距1.5~5.0 cm(76%),遗迹管直径主要集中于0.6~1.6 cm(82%)(图6a、表3),蹼状构造发育;线形潜穴发育单个线形与双线形潜穴两种形式,指示造迹生物生态位广泛。近平行于层面,常与其他遗迹化石共生,发育于开阔台地(图1c)。上段则以R. commune var. auriforme为优势(图2o~q、图4c,d,h~j)(Hall,1843),其潜穴系统由U形潜穴和线形潜穴构成,两翼间距2.3~5.9 cm(79%),遗迹管直径0.4~1.1 cm(88%)(图6b、表3),未见蹼状构造;线形潜穴发育单个线形潜穴形式,指示造迹生物生态位扩展有限。与层面近平行或斜交,常与双壳类、腹足类实体化石共生,发育于潮间带(图1c)。此外,上段局部还发育R. commune problematica(Gümbel,1861),U形潜穴具倾斜层面的后退式蹼状构(图2m),无线形潜穴,指示造迹生物的逃逸行为,亦见于潮间带(图1c)。
表 3 R. commune的遗迹亚种和遗迹变种的形态结构特征与环境响应模式
Table 3. Morphological structure characteristics and environmental response patterns of the subspecies and varieties of R. commune
遗迹亚种或变种 遗迹管直径/cm 两翼间距/cm 蹼状构造 与层面关系 沉积环境 生物扰动指数 共生化石 R. commune var. irregulare 0.6~1.6(82%) 2.4~5.9(79%) 部分具有 平行 开阔台地 3~5 Planolites、Palaeophycus和Thalassinoides R. commune var. auriforme 0.4~1.1(88%) 1.5~5.0(76%) 少量具有 近平行或斜交 潮间带 2~3 双壳类、腹足类 R. commune problematica 0.7~1.2 3.0~6.0 少量具有 大角度倾斜或垂直 潮间带 1~2 无 
图 6 研究区中三叠统关岭组上、下段Rhizocorallium遗迹化石管径分布占比对比
Figure 6. Comparative statistical analyses of the proportion distribution of tube diameter dimensions of Rhizocorallium trace fossils in the upper and lower members of the Middle Triassic Guanling Formation in the study area
-
遗迹化石是生物与环境相互作用的产物,记录了造迹生物的生态习性和沉积环境特征(罗茂等,2007;时国等,2008,2009;Feng et al.,2017;胡斌,2020;Luo et al.,2020)。关岭组下段发育低分异度的遗迹化石组合主要包括:Rhizocorallium、Planolites、Palaeophycus和Thalassinoides(图4i~k)。多期叠加的遗迹化石组合可用于评估沉积速率,密集的叠加(如密集分布的Planolites覆盖于Rhizocorallium之上,图4i)指示在低沉积速率条件下,生物对沉积物进行了反复改造(Rodríguez-Tovar et al.,2007;Boggs,2009;袁周伟等,2017;Shi et al.,2019;王玉洁和王敏,2021)。这一现象表明:早期Rhizocorallium定殖后,沉积速率降低或发生沉积间断,为后期Planolites的造迹生物改造表层沉积物创造了条件。因此,遗迹化石在层面上的高密度分布主要归因于低沉积速率条件下生物扰动的累积效应。造迹生物(尤其是Rhizocorallium)在低沉积速率与缺氧环境下被迫采取高效觅食策略,暗示有机质相对匮乏。此外,Thalassinoides与Rhizocorallium稀疏分布且互不穿插(图4j),暗示可能存在相对较快的沉积事件抑制了生物扰动的充分发育。
关岭组下段以遗迹群为主,而上段则以Rhizocorallium与双壳类、腹足类及脊椎动物骨骼化石共生为特征(图4c~g)。实体化石的数量丰富、类型多样且富含粪球粒,反映了生物多样性的提升。化石埋藏关系显示,双壳类和腹足类壳体常覆压于Rhizocorallium之上(图4c,d),且部分腹足类壳体嵌入遗迹管内(图5b)。这表明Rhizocorallium造迹生物率先定殖,随后双壳类和腹足类生物随生态环境的改善而繁盛,其中富集的粪球粒很可能主要源自腹足类(Luo et al.,2020;郑磊,2022)。脊椎动物骨骼化石的出现,代表了较高营养级生物的出现,揭示了该地区海洋生态系统从下段(二叠纪大灭绝事件后)的幸存—复苏初期阶段,向上段辐射复苏阶段的演化。这为中三叠世扬子陆块西南缘海洋生态系统的恢复进程提供了关键的化石证据(Li et al.,2016;周敏等,2022)。
-
关岭组下段以泥晶灰岩和生物碎屑灰岩为主(图1c)。1~5层以薄—中层生物碎屑灰岩和泥晶灰岩为主,同时见水平层理和少量的Palaeophycus,这些特征指示了低能、静水的陆棚环境(Boggs,2009)(图1c)。6~15层同样以薄—中层生物碎屑灰岩和泥晶灰岩为主,见水平层理和泥裂构造。Rhizocorallium在该层段密集分布(BI=3~5),伴生少量Planolites、Thalassinoides和双壳类化石(图1c),反映低沉积速率和有机质相对较少,促使造迹生物(如Rhizocorallium)采取高效觅食行为(Luo et al.,2020)。以上特征反映沉积环境为低能的开阔台地(图1c)(Boggs,2009;马志鑫等,2020;丁仲昭等,2021)。
关岭组上段以生物碎屑灰岩为主。16~21层以薄—中层生物碎屑灰岩为主,见水平层理和鸟眼构造。存在随机分布且倾角多变的Rhizocorallium(BI=1~3),同时见实体化石(脊椎动物骨骼、双壳类、腹足类)及少量遗迹化石Planolites(图1c),表明较高沉积速率与相对富营养条件促使造迹生物(如Rhizocorallium)采取随机觅食行为。以上特征反映沉积环境为高能的潮间带(Boggs,2009;马志鑫等,2020;丁仲昭等,2021)(图1c)。22~24层发育中—厚层泥晶灰岩、含燧石结核生物碎屑灰岩、泥质灰岩、角砾状白云岩,见水平层理,此套岩性组合及其沉积构造指示局限台地环境(图1c)(Boggs,2009;马志鑫等,2020;丁仲昭等,2021)。
-
(1) 研究区Rhizocorallium遗迹属中,由具蹼状U形觅食迹与线形爬行迹构成的潜穴系统被鉴定为遗迹种R. commune,其形成机制为造迹生物觅食—爬行行为的相互转化。基于沉积环境及分布差异划分为两个变种:R. commune var.irregulare发育于开阔台地,在沉积层面密集分布,反映造迹生物高效觅食策略;R. commune var.auriforme发育于潮间带,在沉积层面稀疏分布,反映其随机觅食行为。
(2) Rhizocorallium的U形遗迹管直径(0.1~2.6 cm)与两翼管间距(0.5~11.9 cm)呈高度正相关(R²=0.926 88),表明造迹生物从幼体到成体的行为模式具有高度一致性,始终以定向觅食和挖掘活动为主要生存策略,伴随个体发育的体型增长,其潜穴系统同步扩展。
(3) 关岭组下段生物碎屑灰岩和泥晶灰岩中,以高密度的Rhizocorallium(BI=3~5)与低分异度的遗迹化石组合为主要特征,主要分布在低能开阔台地;上段生物碎屑灰岩中,以稀疏的Rhizocorallium(BI=1~3)与高分异度的实体化石为主要特征,主要分布在高能潮间带。本研究揭示了Rhizocorallium潜穴系统组成和造迹生物行为习性,深化了对其潜穴机制的理解,为古环境重建提供了更可靠的遗迹学证据。
Morphological Analysis and Paleoenvironmental Significance of Rhizocorallium from theXingyi Area of the Middle Triassic Guanling Formation
-
摘要: 目的 研究兴义地区关岭组中大量的Rhizocorallium,分析其潜穴形态与结构特征,旨在揭示潜穴的形成机制、造迹生物的行为习性及其对古沉积环境的指示意义。 方法 对Rhizocorallium标本进行鉴定与识别,分析其形态结构和形成机制;测量Rhizocorallium U形潜穴的遗迹管横截面直径和两翼管间距,采用线性回归分析参数相关性,以解析造迹生物行为习性;结合生物扰动指数(BI)评估扰动强度,并综合岩性等特征,探讨其沉积环境特征。 结果 (1)Rhizocorallium的基本结构由U形和线形潜穴组成,其形成机制为造迹生物觅食—爬行行为的相互转化;(2)U形遗迹管横截面直径(0.1~2.6 cm)与两翼管间距(0.5~11.9 cm)呈高度正相关(R²=0.926 88),表明造迹生物从幼体到成体行为模式高度一致,符合机会种(r-选择)的生存策略特征;(3)关岭组下段生物碎屑灰岩和泥晶灰岩中,以高密度的Rhizocorallium(BI=3~5)为特征,主要分布在低能开阔台地;上段生物碎屑灰岩中,以稀疏的Rhizocorallium(BI=1~3)为特征,主要分布在高能潮间带。 结论 本研究对Rhizocorallium的形态识别与属种鉴定,揭示了其潜穴特征、形成机制、造迹生物个体发育的行为一致性(r-选择策略)及环境响应适应性,进一步证实了其作为重建古生态与古环境的可靠遗迹学标志。
-
关键词:
- 关岭组 /
- Rhizocorallium /
- 遗迹化石 /
- 造迹生物 /
- 兴义地区
Abstract: Objective The Rhizocorallium trace fossils in this study are notably well-developed and well-preserved, and therefore offer substantial research potential. The morphological composition and structural features of Rhizocorallium burrows were analyzed to elucidate the formation mechanisms of the burrow system, and the behavioral patterns of the trace-making organisms and their significance as indicators of paleosedimentary environments were clarified. Methods A total of 99 U-shaped burrows were measured to determine marginal tube diameters and burrow widths, and linear regression correlation analyses were performed to evaluate the relationship between the two variables. Building upon existing ichnological literature, a comprehensive investigation was undertaken to describe the morphology, formation mechanisms and behavior of the trace-making organisms responsible for Rhizocorallium burrows. Se-condary structures such as linear crawling trails were also identified and their spatial and functional relationships with the primary U-shaped foraging traces were evaluated. The bioturbation index (BI) was employed to quantify the extent of sediment disturbance caused by Rhizocorallium-making organisms, and lithological data was integrated with trace fossil assemblages in the Guanling Formation to develop a detailed paleoenvironmental reconstruction of their habitat preferences. Additionally, systematic paleontological analyses of trace fossil assemblages from the lower stratigraphic member were undertaken alongside examinations of body fossils from the upper member to assess biological differentiation patterns and the complexity of trophic structures throughout the depositional sequence. Results (1) The fundamental architecture of Rhizocorallium consists of U-shaped and linear burrows. Most U-shaped burrows feature a curved marginal tube enclosing spreiten lamellae and are interpreted as feeding traces generated during foraging activities, constituting the primary structural component. Linear burrows, occurring in both single and double forms, are considered to be crawling trails formed during locomotion, and represent secondary structures. (2) Marginal tube diameters of U-shaped burrows range from 0.1 cm to 2.6 cm, while burrow widths vary between 0.5 cm and 11.9 cm. These parameters exhibit a strong positive correlation (R² = 0.926 88), indicating that the behavioral patterns of the trace-making organisms remained consistent throughout ontogenetic development from larval to adult stages. This behavioral consistency aligns with an r-selected survival strategy typical of opportunistic species. Directional foraging and burrowing behaviors are maintained as core survival strategies, with burrow systems expanding proportionally with individual growth. Moreover, a subset of very small burrows is interpreted as juvenile forms of Rhizocorallium trace fossils. (3) The lower member of the Guanling Formation, primarily consisting of bioclastic limestone and micritic limestone, exhibits abundant assemblages of Rhizocorallium trace fossils, including Planolites, Palaeophycus and Thalassinoides, with bioturbation indices (BI) ranging from 3 to 5. These assemblages are associated with low-diversity trace fossil communities, suggesting deposition within a low-energy, open platform environment. In contrast, the upper member, dominated by bioclastic limestone with sparse occurrences of Rhizocorallium (BI = 1-3) and a highly diverse assemblage of body fossils (e.g., bivalves, gastropods and vertebrate remains) reflects a high-energy intertidal depositional setting. Systematic paleontological investigations have demonstrated an upward progression in biological differentiation throughout the sedimentary sequence, with the paleoecosystem’s trophic structure becoming increasingly complex and approaching a stable, balanced state. Conclusions The morphological characterization and analysis of Rhizocorallium ichnofossils provide insights into the compositional features, formation mechanisms and behavioral stability across ontogenetic stages of the trace-making organisms, indicative of an r-selected reproductive strategy. Furthermore, these traces reveal adaptive responses to environmental variability. Collectively, these results affirm the efficacy of Rhizocorallium as a reliable ichnological proxy for reconstructing paleoecological conditions and paleosedimentary environments.-
Key words:
- Guanling Formation /
- Rhizocorallium /
- trace fossils /
- trace-making organisms /
- Xingyi area
-
图 1 研究区古地理特征与岩性柱状图
(a) Middle Triassic paleogeography of South China (Ma et al., 2022); (b) field real scene; (c) comprehensive lithology histogram of Middle Triassic
Figure 1. Paleogeographic characteristics and lithology histogram of the study area
Fig. 1
图 2 研究区中三叠统关岭组Rhizocorallium潜穴系统要素
(a) morphological characteristics of the U⁃shaped burrows of Rhizocorallium; (b) schematic illustration corresponding to (a); (c) curved U⁃shaped feeding traces; (d) schematic illustration corresponding to (c); (e) coexistence of large and small morphotypes of Rhizocorallium; (f) densely developed Rhizocorallium on a horizontal plane; (g) magnified view of the area shown in (f); (h) schematic illustration corresponding to (g); (i) further magnified view of the area shown in (f); (j) schematic illustration corresponding to (i); (k) U⁃shaped burrows of Rhizocorallium; (l) magnified view of the area in (k); (m) U⁃shaped burrows of Rhizocorallium exhibiting web⁃like structures in a vertical section; (n) schematic illustration corresponding to (m); (o) Rhizocorallium oriented parallel to the bedding planes; (p) Rhizocorallium oriented perpendicular to the bedding planes; (q) densely developed Rhizocorallium
Figure 2. Elements of the Rhizocorallium submarine system of the Middle Triassic Guanling Formation in the study area
Fig. 2
图 3 研究区中三叠统关岭组Rhizocorallium U形潜穴参数频率分布直方图
(a) histogram of diameter length frequency of vestige tube; (b) frequency histogram of the distance between the two wing tubes; (c) correlation analysis of the diameter of the relic tube and the distance between the two wing tubes
Figure 3. Histogram of the frequency distribution of U⁃shaped burrow parameters of Rhizocorallium from the Middle Triassic Guanling Formation in the study area
Fig. 3
图 4 研究区中三叠统关岭组遗迹化石—实体化石富集层
(a) cross- sectional view of Rhizocorallium trace fossils in the vertical orientation; (b) magnified detail of the area in (a); (c) coexistence of Rhizocorallium with bivalve fossils; (d) coexistence of Rhizocorallium with gastropod fossils; (e) bivalve fossils; (f, g) vertebrate skeletal fossils; (h) Rhizocorallium exhibiting steep penetration angle into sedimentary layer; (i) Planolites overlying Rhizocorallium; (j) coexistence of Thalassinoides and Rhizocorallium; (k) Palaeophycus; (l) horizontal bedding structures; (m) bird’s eye structures; (n) mud crack features
Figure 4. Trace fossils and solid fossils of the Middle Triassic Guanling Formation in the study area
Fig. 4
图 5 研究区中三叠统关岭组Rhizocorallium显微结构特征
(a) interface of interior and exterior of the trace fossil tube characterized by indistinct boundaries; (b) central region within the trace fossil tube; (c) bivalve shells in the rock surrounding the trace fossil tube; (d) algal aggregates; (e) foraminifera; (f, g) pyrite associated with web-like structures; (h) interface of interior and exterior of the trace fossil tube filled with secondary calcite; (i) micritic limestone; (j) bioclastic limestone
Figure 5. Microscopic structural characteristics of Rhizocorallium from the Triassic Guanling Formation in the study area
Fig. 5
图 6 研究区中三叠统关岭组上、下段Rhizocorallium遗迹化石管径分布占比对比
(a, a') U-shaped potholes in the lower section of the Guanling Formation; (b, b') U-shaped potholes in the upper section of the Guanling Formation
Figure 6. Comparative statistical analyses of the proportion distribution of tube diameter dimensions of Rhizocorallium trace fossils in the upper and lower members of the Middle Triassic Guanling Formation in the study area
Fig. 6 表 1 生物扰动等级分类(Taylor and Goldring,1993)
Table 1. Classification of bioturbation grade (Taylor and Goldring, 1993)
扰动指数 扰动量/% 描述 0 0 无生物扰动现象 1 1~5 极少且清晰的遗迹化石及逃逸构造,零星的生物扰动现象 2 6~30 遗迹化石分布较为稀疏,逃逸构造现象普遍,层理清晰,生物扰动程度较低 3 31~60 遗迹化石轮廓分明,无重叠现象,层理界面明晰,扰动程度中等 4 61~90 遗迹化石分布密度较高,呈现出明显的叠覆现象,层理界面模糊不清,生物扰动程度较高 5 91~99 沉积物再改造程度较低,后期形成的遗迹化石轮廓较为清晰,层理界面彻底遭到破坏,生物扰动程度强 6 100 遗迹化石几乎全部叠覆在一起,难以鉴别其遗迹形态,沉积层面受到造迹生物的反复改造,层理界面彻底遭到破坏  下载: 导出CSV
表 2 研究区中三叠统关岭组下段遗迹化石发育特征
Table 2. Fossil development characteristics of relics in the lower member of the Middle Triassic Guanling Formation in the study area
遗迹属 形态特征 造迹生物习性 层面关系 充填形式 Rhizocorallium U形、线形 觅食、爬行 平行、斜交、垂直 主动 Planolites 管状 进食 平行 主动 Palaeophycus 管状 居住 平行、斜交 被动 Thalassinoides Y形分枝 居住、觅食 斜交 主动
下载: 导出CSV
表 3 R. commune的遗迹亚种和遗迹变种的形态结构特征与环境响应模式
Table 3. Morphological structure characteristics and environmental response patterns of the subspecies and varieties of R. commune
遗迹亚种或变种 遗迹管直径/cm 两翼间距/cm 蹼状构造 与层面关系 沉积环境 生物扰动指数 共生化石 R. commune var. irregulare 0.6~1.6(82%) 2.4~5.9(79%) 部分具有 平行 开阔台地 3~5 Planolites、Palaeophycus和Thalassinoides R. commune var. auriforme 0.4~1.1(88%) 1.5~5.0(76%) 少量具有 近平行或斜交 潮间带 2~3 双壳类、腹足类 R. commune problematica 0.7~1.2 3.0~6.0 少量具有 大角度倾斜或垂直 潮间带 1~2 无
下载: 导出CSV
-
[1] 丁仲昭,马志鑫,张启跃,等. 2021. 云南罗平江边地区中三叠统关岭组二段古环境特征[J]. 沉积学报,39(6):1406-1424. Ding Zhongzhao, Ma Zhixin, Zhang Qiyue, et al. 2021. Paleoenvironment analyses of the Second member, Middle Triassic Guanling Formation in Luoping Jiangbian, Yunnan[J]. Acta Sedimentologica Sinica, 39(6): 1406-1424. [2] 冯学谦. 2018. 中国南方和西北地区早—中三叠世遗迹化石生态特征及其对海洋生态系统复苏过程的响应[D]. 武汉:中国地质大学. Feng Xueqian. 2018. Early and Middle Triassic trace fossils from South and Northwest China and response for biotic recovery of marine ecosystems[D]. Wuhan: China University of Geo-sciences. [3] 贵州省地质矿产局. 1987. 贵州省区域地质志[M]. 北京:地质出版社:1-700. Bureau of Geology and Mineral Resources of Guizhou Province. 1987. Regional geology of Guizhou province[M]. Beijing: Geological Publishing House: 1-700. [4] 韩继明. 2023. 黔西南地区中三叠世关岭组遗迹化石及古环境意义[D]. 南昌:东华理工大学. Han Jiming. 2023. Trace fossils and their paleoenvironmental significance of the Middle Triassic Guanling Formation, southwest of Guizhou province[D]. Nanchang: East China University of Technology. [5] 胡斌. 2020. 中国新遗迹学研究[M]. 青岛:中国石油大学出版社:1-255. Hu Bin. 2020. Advances in neoichnology of China[M]. Qingdao: China University of Petroleum Press: 1-255. [6] 荆锡贵,陈政安,李凤杰,等. 2019. 龙门山地区中泥盆统养马坝组风暴沉积中的遗迹化石及其环境意义[J]. 沉积学报,37(4):749-757. Jing Xigui, Chen Zhengan, Li Fengjie, et al. 2019. Ichno-fossils and their environmental significance in storm deposit from the Middle Devonian Yangmaba Formation in Longmenshan area[J]. Acta Sedimentologica Sinica, 37(4): 749-757. [7] 李大庆. 1990. 云南梅树村震旦系—寒武系边界层水平状遗迹化石形态功能分析和环境意义[J]. 矿物岩石,10(4):29-35. Li Da-qing. 1990. Behaviour patter analysis and environmental significance of the horizontal trace fossils from the Sinian-Cambrian boundary beds at meishucun, Yunnan, China[J]. Journal of Mineralogy and Petrology, 10(4): 29-35. [8] 林文球,刘宗文,王洪峰. 1986. 四川龙门山平驿铺组沉积环境及U形蹼状构造潜穴探讨[J]. 矿物岩石,6(3):121-129,198. Lin Wenqiu, Liu Zongwen, Wang Hongfeng. 1986. The approach to vertical U-shaped spreiten-burrow and Lower Devonian Pingyipu Formation nearshore-foreshore depositional environments, Longmen Mountain, Sichuan[J]. Journal of Mineralogy and Petrology, 6(3): 121-129, 198. [9] 罗茂,时国,龚一鸣. 2007. 贵阳花溪早三叠世遗迹化石及其对二叠纪末生物大灭绝事件后生物复苏的启示[J]. 古地理学报,9(5):519-532. Luo Mao, Shi Guo, Gong Yiming. 2007. Early Triassic trace fossils in Huaxi region of Guiyang and their implications for biotic recovery after the end-Permian mass extinction[J]. Journal of Palaeogeography, 9(5): 519-532. [10] 马志鑫,张启跃,文芠,等. 2020. 云南罗平中三叠统关岭组沉积环境演化及化石埋藏[J]. 地球科学,45(8):3104-3118. Ma Zhixin, Zhang Qiyue, Wen Wen, et al. 2020. Sedimentary environment evolution and fossil taphonomic implications of Middle Triassic Guanling Formation in Luoping, Yunnan province[J]. Earth Science, 45(8): 3104-3118. [11] 梅冥相,马永生,邓军,等. 2003. 南盘江盆地及邻区早中三叠世层序地层格架及其古地理演化:兼论从“滇黔桂盆地”到“南盘江盆地”的演变过程[J]. 高校地质学报,9(3):427-439. Mei Ming-xiang, Ma Yongsheng, Deng Jun, et al. 2003. Sequence-stratigraphic framework of the Early to Middle Triassic and evolution of sedimentary-facies and paleogeography in the Nanpanjiang Basin and its adjacent areas: Discussion on evolutionary process from the Dianqiangui Basin to the Nanpanjia[J]. Geological Journal of China Universities, 9(3): 427-439. [12] 苗兰云,朱茂炎. 2014. 华北板块南部寒武系底部辛集组遗迹化石及其时代意义[J]. 古生物学报,53(3):274-289. Miao Lanyun, Zhu Maoyan. 2014. Trace fossils from the basal Cambrian Xinji Formation in southern North China Plate and its chronological significance[J]. Acta Palaeontologica Sinica, 53(3): 274-289. [13] Pemberton S G,周志澄, MacEachern J. 2001. 机会(r-选择)和均衡(K-选择)遗迹化石的现代生态学解释[J]. 古生物学报,40(1):134-142. Pemberton S G, Zhou Zhicheng, MacEachern J. 2001. Modern ecological interpretation of opportunistic (r-selected) and equilibrium (K-selected) trace fossils[J]. Acta Palaeontologica Sinica, 40(1): 134-142. [14] 彭成名,王刚,陈原林,等. 2016. 南盘江盆地中北部三叠纪深水盆地古水流方向研究[J]. 沉积学报,34(6):1120-1132. Peng Chengming, Wang Gang, Chen Yuanlin, et al. 2016. Triassic paleo-current study in the middle-northern part of the Nanpanjiang deep basin[J]. Acta Sedimentologica Sinica, 34(6): 1120-1132. [15] 齐永安,李妲,代明月,等. 2013. 豫西寒武系第三统张夏组鲕粒灰岩中机会生物留下的遗迹化石[J]. 古生物学报,52(1):80-85. Qi Yong'an, Li Da, Dai Mingyue, et al. 2013. Opportunistic trace fossils from the Changhia Formation (Third series, Cambrian), western Henan[J]. Acta Palaeontologica Sinica, 52(1): 80-85. [16] 时国,田景春,喻美艺. 2008. 贵阳花溪地区早—中三叠世碳酸盐岩角砾岩楔沉积特征[J]. 古地理学报,10(5):521-528. Shi Guo, Tian Jingchun, Yu Meiyi. 2008. Sedimentary features of carbonate breccia wedges of the Early-Middle Triassic in Huaxi area, Guiyang city[J]. Journal of Palaeogeography, 10(5): 521-528. [17] 时国,田景春,张翔,等. 2010. 黔西南三叠系层序充填格架及对印支运动响应[J]. 西南石油大学学报(自然科学版),32(2):41-47. Shi Guo, Tian Jingchun, Zhang Xiang, et al. 2010. The sequence filling framework of Triassic in southwestern Guizhou and the response to Indo China movement[J]. Journal of Southwest Petroleum University (Science & Technology Edition), 32(2): 41-47. [18] 时国,喻美艺,罗茂,等. 2009. 贵阳花溪地区下三叠统大冶组遗迹化石及沉积环境分析[J]. 沉积学报,27(3):427-434. Shi Guo, Yu Meiyi, Luo Mao, et al. 2009. Trace fossils and their depositional environments of the Early Triassic Daye Formation in Huaxi area,Guiyang[J]. Acta Sedimentologica Sinica, 27(3): 427-434. [19] 王玉洁,王敏. 2021. 豫西登封地区寒武系张夏组中部生物扰动构造及其地质意义[J]. 吉林大学学报(地球科学版),51(4):1019-1029. Wang Yujie, Wang Min. 2021. Bioturbation structure and their geological implications from Zhangxia Formation of Cambrian in Dengfeng area, western Henan province[J]. Journal of Jilin University (Earth Science Edition), 51(4): 1019-1029. [20] 王约. 2004. 贵州独山泥盆纪弗拉期—法门期生物灭绝后的生物遗迹[J]. 古生物学报,43(1):132-141. Wang Yue. 2004. Some trace fossils after the Frasnian-Famennian extinct in Dushan area, southern Guizhou province, China[J]. Acta Palaeontologica Sinica, 43(1): 132-141. [21] 向坤鹏,贺永忠,赵磊,等. 2019. 黔西南郭家湾地区中三叠世坡段组幻龙化石埋藏环境:来自碳酸盐岩岩相与碳、氧同位素的指示[J]. 沉积学报,37(5):957-967. Xiang Kunpeng, He Yongzhong, Zhao Lei, et al. 2019. The burial environment of nothosaurs in the Middle Triassic Poduan Formation, Guojiawan, southwest of Guizhou: Implications from carbonate lithofacies and carbon and oxygen isotopes[J]. Acta Sedimentologica Sinica, 37(5): 957-967. [22] 肖加飞,魏家庸,胡瑞忠. 2004. 黔西南及邻区中—晚三叠世层序地层格架[J]. 地质学报,78(5):591-599. Xiao Jiafei, Wei Jiayong, Hu Ruizhong. 2004. The Middle-Late Triassic sequence stratigraphic framework in southwestern Guizhou and adjacent regions[J]. Acta Geologica Sinica, 78(5): 591-599. [23] 杨群慧,周怀阳,季福武,等. 2008. 海底生物扰动作用及其对沉积过程和记录的影响[J]. 地球科学进展,23(9):932-941. Yang Qunhui, Zhou Huaiyang, Ji Fuwu, et al. 2008. Bioturbation in seabed sediments and its effects on marine sedimentary processes and records[J]. Advances in Earth Science, 23(9): 932-941. [24] 杨式溥. 1990. 古遗迹学[M]. 北京:地质出版社:1-179. Yang Shipu. 1990. Palaeoichnology[M]. Beijing: Geological Publishing House: 1-179. [25] 杨式溥. 1999. 遗迹化石的古环境和古地理意义[J]. 古地理学报,1(1):7-19. Yang Shipu. 1999. Palaeoenvironmental and palaeogeographic significance of trace fossils[J]. Journal of Palaeo-geography, 1(1): 7-19. [26] 杨式溥,孙永传. 1982. 贵州清镇中三叠统关岭组的遗迹化石及其沉积环境意义[J]. 石油与天然气地质,3(4):369-378. Yang Shipu, Sun Yongchuan. 1982. Trace fossils of Guanling Formation and its sedimentary environment[J]. Oil & Gas Geology, 3(4): 369-378. [27] 杨式溥,张建平,杨美芳. 2004. 中国遗迹化石[M]. 北京:科学出版社:1-417. Yang Shipu, Zhang Jianping, Yang Meifang. 2004. Trace fossils of China[M]. Beijing: Science Press: 1-417. [28] 余关美,时国. 2016. 贵阳地区下三叠统安顺组遗迹化石及古环境意义[J]. 沉积学报,34(4):626-633. Yu Guanmei, Shi Guo. 2016. Trace fossils and their paleoenvironmental significance of the Early Triassic Anshun Formation in Huaxi area, Guiyang[J]. Acta Sedimentologica Sinica, 34(4): 626-633. [29] 袁周伟,熊康宁,肖时珍,等. 2017. 贵州三叠纪化石群古地理和古生态全球对比分析与世界遗产价值[J]. 科学技术与工程,17(31):8-16. Yuan Zhouwei, Xiong Kangning, Xiao Shizhen, et al. 2017. Global comparative analysis on the paleogeography and paleoecological environment of Guizhou Triassic fossil and the world natural heritage values[J]. Science Technology and Engineering, 17(31): 8-16. [30] 张立军,龚一鸣,马会珍. 2011. 华南泥盆纪遗迹化石及遗迹相[J]. 古地理学报,13(4):397-418. Zhang Lijun, Gong Yiming, Ma Huizhen. 2011. The Devonian trace fossils and ichnofacies from South China[J]. Journal of Palaeogeography, 13(4): 397-418. [31] 张立军,赵曌,龚一鸣. 2015. 遗迹化石对显生宙5大生物—环境事件的响应[J]. 地球科学,40(2):381-396. Zhang Lijun, Zhao Zhao, Gong Yiming. 2015. Trace fossils as a proxy of the big 5 biotic- and environmental events in the Phanerozoic[J]. Earth Science, 40(2): 381-396. [32] 张喜洋,齐永安,代明月,等. 2015. 河南登封寒武系第三统张夏组核形石与遗迹化石的耦合变化[J]. 微体古生物学报,32(2):184-193. Zhang Xiyang, Qi Yong'an, Dai Mingyue, et al. 2015. Coupling variation of oncoids and trace fossils in the Zhangxia Formation (Cambrian series 3), Dengfeng,western Henan province[J]. Acta Micropalaeontologica Sinica, 32(2): 184-193. [33] 赵曌. 2017. 遗迹化石Rhizocorallium的系统遗迹学和古生态学研究[D]. 焦作:河南理工大学. Zhao Zhao. 2017. Systematic ichnology and paleoecology study of trace fossil Rhizocorallium [D]. Jiaozuo: Henan University of Technology. [34] 赵曌,张立军. 2017. 遗迹化石Rhizocorallium中莓状黄铁矿对古环境古生态的指示:以豫西南上泥盆统为例[J]. 沉积学报,35(3):480-488. Zhao Zhao, Zhang Lijun. 2017. Ecological and environmental interpretation of the trace fossil rhizocorallium based on pyrite framboids of Upper Devonian in southwest of Henan province[J]. Acta Sedimentologica Sinica, 35(3): 480-488. [35] 郑磊. 2022. 上海长江口南岸第四纪钻孔微体古生物化石分布特征及其沉积环境指示意义[J]. 上海国土资源,43(4):1-7. Zheng Lei. 2022. Distribution of microfossils record in Quaternary sediments and its environmental significance in the south bank of the Yangtze Estuary[J]. Shanghai Land & Resources, 43(4): 1-7. [36] 周敏,江大勇, Motani R,等. 2022. 贵州盘州中三叠世Mixosaurus panxianensis(盘县混鱼龙)前肢形态差异及种内变化探讨[J]. 古生物学报,61(4):643-653. Zhou Min, Jiang Dayong, Motani R, et al. 2022. Morphological differences and intraspecific variations of the forefins of Mixosaurus panxianensis from the Middle Triassic of Panzhou, Guizhou[J]. Acta Palaeontologica Sinica, 61(4): 643-653. [37] Basan P B, Scott R W. 1979. Morphology of Rhizocorallium and associated traces from the Lower Cretaceous Purgatoire Formation, Colorado[J]. Palaeogeography, Palaeoclimatology, Palaeoecology, 28: 5-23. [38] Boggs S. 2009. Petrology of sedimentary rocks[M]. 2nd ed. Cambridge: Cambridge University Press. [39] Farrow G E. 1966. Bathymetric zonation of Jurassic trace fossils from the coast of Yorkshire, England[J]. Palaeogeography, Palaeo-climatology, Palaeoecology, 2: 103-151, 109-117, 123-139, 145-151. [40] Feng X Q, Chen Z Q, Woods A, et al. 2017. Anisian (Middle Triassic) marine ichnocoenoses from the eastern and western margins of the Kamdian Continent, Yunnan province, SW China: Implications for the Triassic biotic recovery[J]. Global and Planetary Change, 157: 194-213. [41] Firtion F. 1958. Sur la présence d'ichnites dans le Portlandien del’Ile d'Oléron (Charente maritime)[J].Annales Universitatis Saraviensis. Medizin, 7: 107-112. [42] Fürsich F T. 1974a. Ichnogenus Rhizocorallium [J]. Paläontologische Zeitschrift, 48(1/2): 16-28. [43] Fürsich F T. 1974b. Corallian (Upper Jurassic) trace fossils from England and Normandy[J]. Stuttgarter Beiträge zur Naturkunde, 13: 1-52. [44] Gümbel C W. 1861. Geognostische Beschreibung des bayerischen Alpengebirges und seines Vorlandes[M]. Justus Perthes, Gotha. [45] Hall J. 1843. Geology of New-York: Part IV Comprising the survey of the fourth geological district[M]. Carroll and Cook, Albany. [46] Knaust D. 2013. The ichnogenus Rhizocorallium: Classification, trace makers, palaeoenvironments and evolution[J]. Earth-Science Reviews, 126: 1-47. [47] Li C, Wu X C, Zhao L J, et al. 2016. A new armored archosauriform (Diapsida: Archosauromorpha) from the marine Middle Triassic of China, with implications for the diverse life styles of archosauriforms prior to the diversification of Archosauria[J]. The Science of Nature, 103(11/12): 95. [48] Li Z H, Lenton T M, Zhang F F, et al. 2025. Earth system instability amplified biogeochemical oscillations following the end-Permian mass extinction[J]. Nature Communications, 16(1): 3703. [49] Luo M, Shi G R, Buatois L A, et al. 2020. Trace fossils as proxy for biotic recovery after the end-Permian mass extinction: A critical review[J]. Earth-Science Reviews, 203: 103059. [50] Ma Z X, Hu S X, Wu H C, et al. 2022. High productivity promoted exceptional fossil preservation of the early Middle Triassic Luoping biota of Yunnan province, China[J]. Palaeogeography, Palaeoclimatology, Palaeoecology, 607: 111286. [51] Mayer G. 1954. Ein neues Rhizocorallium aus dem mittleren hauptmuschelkalk von Bruchsal[M]. Beitr. Naturk. Forsch. Südwestdeutschl.13: 80-83. [52] Miller III W. 2003. Paleobiology of complex trace fossils[J]. Palaeogeography, Palaeoclimatology, Palaeoecology, 192(1/4): 3-14. [53] Rodríguez-Tovar F J, Pérez-Valera F, Pérez-López A. 2007. Ichnological analysis in high-resolution sequence stratigraphy: The Glossifungites ichnofacies in Triassic successions from the Betic Cordillera (southern Spain)[J]. Sedimentary Geology, 198(3/4): 293-307. [54] Schlirf M. 2011. A new classification concept for U-shaped spreite trace fossils[J]. Neues Jahrbuch für Geologie und Paläontologie-Abhandlungen, 260(1): 33-54. [55] Schütte J H, Merckel C V. 1761. Oryctographia Jenensis, sive fossilium et mineralium in agro Jenensi[M]. Jena: Güthuius Jena. [56] Seilacher A. 1967. Bathymetry of trace fossils[J]. Marine Geology, 5(5/6): 413-428. [57] Shi G, Woods A D, Yu M Y, et al. 2019. Lower Triassic limulid trackways (Kouphichnium) from the southwestern margin of the Yangtze carbonate platform: Paleoenvironmental and paleoecological implications[J]. Palaios, 34(4): 229-243. [58] Taylor A M, Goldring R. 1993. Description and analysis of bioturbation and ichnofabric[J]. Journal of the Geological Society, 150(1): 141-148. [59] Wang H Z, Zhang H Z, Zhang Y M, et al. 2024. Sedimentary facies controlled biogeochemical process of biotic extinction and turnover across the Cambrian SPICE event[J]. Communications Earth & Environment, 5(1): 683. [60] Zhang L J, Knaust D, Zhao Z. 2016. Palaeoenvironmental and ecological interpretation of the trace fossil Rhizocorallium based on contained iron framoboids (Upper Devonian, South China)[J]. Palaeogeography, Palaeoclimatology, Palaeoecology, 446: 144-151. [61] Zhao Z, Fan R Y, Zhang L J, et al. 2020. Behavioural responses of Rhizocorallium to storm events: Evidence from the Middle Triassic of SW China[J]. Palaeogeography, Palaeoclimatology, Palaeoecology, 545: 109640. -

 点击查看大图
计量
- 文章访问数: 248
- HTML全文浏览量: 50
- PDF下载量: 222
- 被引次数: 0